发布于:2021年5月11日
doi: 10.3389/fmicb.2021.669785
编辑:
George Tsiamis,帕特雷大学,希腊
审稿人:
Hyung-Kyoon Choi,中앙大学,韩国
Yan-Qun Liu,沈阳农业大学,中国
*通讯作者:
Xiao Zou xzou@gzu.edu.cn 这些作者对本文贡献相同,共享第一作者身份
专栏:
本文隶属于《微生物共生》专栏,该专栏是《微生物学前沿》期刊的一部分
收稿日期:
2021年2月19日
接受日期:
2021年4月8日
发布日期:
2021年5月11日
引用:
Zeng Z, Mou D, Luo L, Zhong W, Duan L and Zou X (2021) 不同培养环境对蝉花产量、细菌群落及代谢产物的影响。Front. Microbiol. 12:669785.
doi: 10.3389/fmicb.2021.669785
不同培养环境对蝉花产量、细菌群落及代谢产物的影响
赵颖曾1,2,3†,牟丹1†,罗丽1,钟文林1,段琳1,邹晓1,2*
1贵州大学生命科学学院真菌资源研究所,中国贵阳;
2贵州大学生命科学学院/农业生物工程研究所,贵州省植物资源保护与种质创新重点实验室(教育部),中国贵阳;
3云南大学生态与环境学院,中国昆明
蝉花(Cordyceps cicadae)是一种具有重要药用价值的虫生真菌,但由于过度采挖,其野生资源已无法满足市场需求。因此,人工培育成为重要替代方案,但关于蝉花在自然生境中培育的研究尚未见报道。本研究旨在探索在自然生境(马尾松林土壤)中培育蝉花的可行性,并评估比较不同生长阶段及不同培养环境(自然生境土壤与无菌玻璃瓶)下蝉花的产量、代谢产物含量及细菌群落组成。结果表明,在自然生境中培育蝉花具有可行性,其子实体形成率高达95%。自然生境中培育的蝉花氮化合物(氨基酸)含量显著高于玻璃瓶培养,而产量及碳化合物(甘露醇与多糖)和核苷(虫草素与腺苷)含量较低。不同生长阶段及培养环境中富集的细菌属存在差异,且这些细菌属与生长过程中代谢产物的含量密切相关。本研究证实了一种新型蝉花培育方法的可行性,可作为野生资源的替代方案,同时为蝉花的生长机制及其与土壤微生物的互作提供了新见解。
关键词:蝉花,自然生境培育,人工培养,代谢产物,细菌群落组成,PICRUSt
引言
蝉花(Cordyceps cicadae)是麦角菌科(Claviciptaceae)的一种虫生真菌,作为传统中药已有1600余年应用历史(Liu, 2012)。其寄主包括蟪蛄(Cicada flammata Distant)、鸣蝉(Platypleura kaempferi Fabricius)等多种蝉类(Zeng et al., 2014, 2017)。当蝉若虫被蝉花无性型——蝉棒束孢(Isaria cicadae)寄生致死后,菌体可在虫体表面形成子实体(Cheng et al., 2006)。蝉花主要分布于竹林、阔叶林及常绿阔叶林土壤中,在中国秦岭-淮河以南的贵州、云南、四川、浙江等省及日本、韩国、澳大利亚、巴西等国均有分布(Liu, 2012; Chen Z.A. et al., 2014; Zeng et al., 2015)。
在中国,蝉花被用于治疗慢性肾病、心悸及小儿惊风,兼具食补功效(Hsu et al., 2015; Li et al., 2019)。近年研究发现其代谢产物具有重要药理活性:碳化合物甘露醇具有利尿、抗自由基、改善脑微循环等作用(Lin et al., 2016; Zhang et al., 2019);多糖作为另一类关键碳化合物,具有抗氧化、调节免疫及抗糖尿病功能(Lu et al., 2016; Zhang et al., 2018; Wang et al., 2019);核苷类成分腺苷具有抗炎、神经保护及抗惊厥作用,可改善细胞活力并防治神经退行性疾病(Latini and Pedata, 2001; Nakav et al., 2008; Olatunji et al., 2016b);虫草素则表现出抗癌、免疫调节及抗氧化等多重功效(Olatunji et al., 2016a; Zhang et al., 2019)。
由于药用与滋补需求激增,野生蝉花遭过度采挖导致资源锐减(Liu et al., 2008)。为保障可持续供给,人工培育技术成为必然选择(Hsu et al., 2015; He W.W. et al., 2019; Sun et al., 2019; Nxumalo et al., 2020)。现有蝉花人工培育技术包括液体发酵(Cheng et al., 2006, 2012)、谷物培养基培养(Feng, 2002; Zhang et al., 2012; Ke and Lee, 2016)及柞蚕蛹培养(Hu et al., 2009; He Y.Q. et al., 2019)。其中柞蚕蛹培养法因能同时获得虫体与子实体近年备受青睐(He W.W. et al., 2019),但现有研究多局限于灭菌环境(如玻璃瓶、沙土等)(Hu et al., 2009; Liu et al., 2018),尽管消费者更倾向“天然”培育方式(Huang, 2008),针对自然生境培养的研究仍属空白。
野生蝉花生长于山茶、油茶、梨树等植被丰富的复杂生境(Liu, 2012; Zeng et al., 2015)。研究表明其生境土壤、菌核及外部菌丝层富含微生物群落且共享部分细菌属,菌核中还检测到外生菌根真菌(Zeng et al., 2019; Mou et al., 2021),暗示蝉花可能通过微生物与周边植物及土壤形成生态关联,进而影响其生长与代谢。已有研究证实宿主微生物群落组成受生长环境影响(Mueller et al., 2020),且虫草菌微生物群落变化可调控宿主代谢产物合成(Zhang et al., 2010; Qu et al., 2019a,b)。因此,自然生境培养可作为研究土壤微生物互作及其对蝉花生长代谢影响的实验模型。此外,我们前期发现蝉花菌核中除棒束孢属外真菌相对丰度不足1%,而细菌群落更为丰富稳定(Zeng et al., 2019; Mou et al., 2021),故本研究重点解析菌核细菌群落特征。
本研究通过比较无菌玻璃瓶与马尾松林自然生境土壤两种培养环境下蝉花的产量、菌核细菌群落及代谢产物差异,旨在:(1)验证自然生境培养的可行性;(2)揭示不同培养环境对细菌群落的影响;(3)探究菌核细菌群落与代谢产物的关联,为蝉花资源可持续利用提供科学依据。
材料与方法
蝉花的两种培养方法
实验所用蝉棒束孢菌株GZUIFR_DJS1(保藏于贵州大学真菌资源研究所)经PDA培养基活化纯化后,25℃培养5–7天至产孢,用含0.05%吐温80的无菌水配制孢子悬液(浓度5×10^7孢子/mL)。
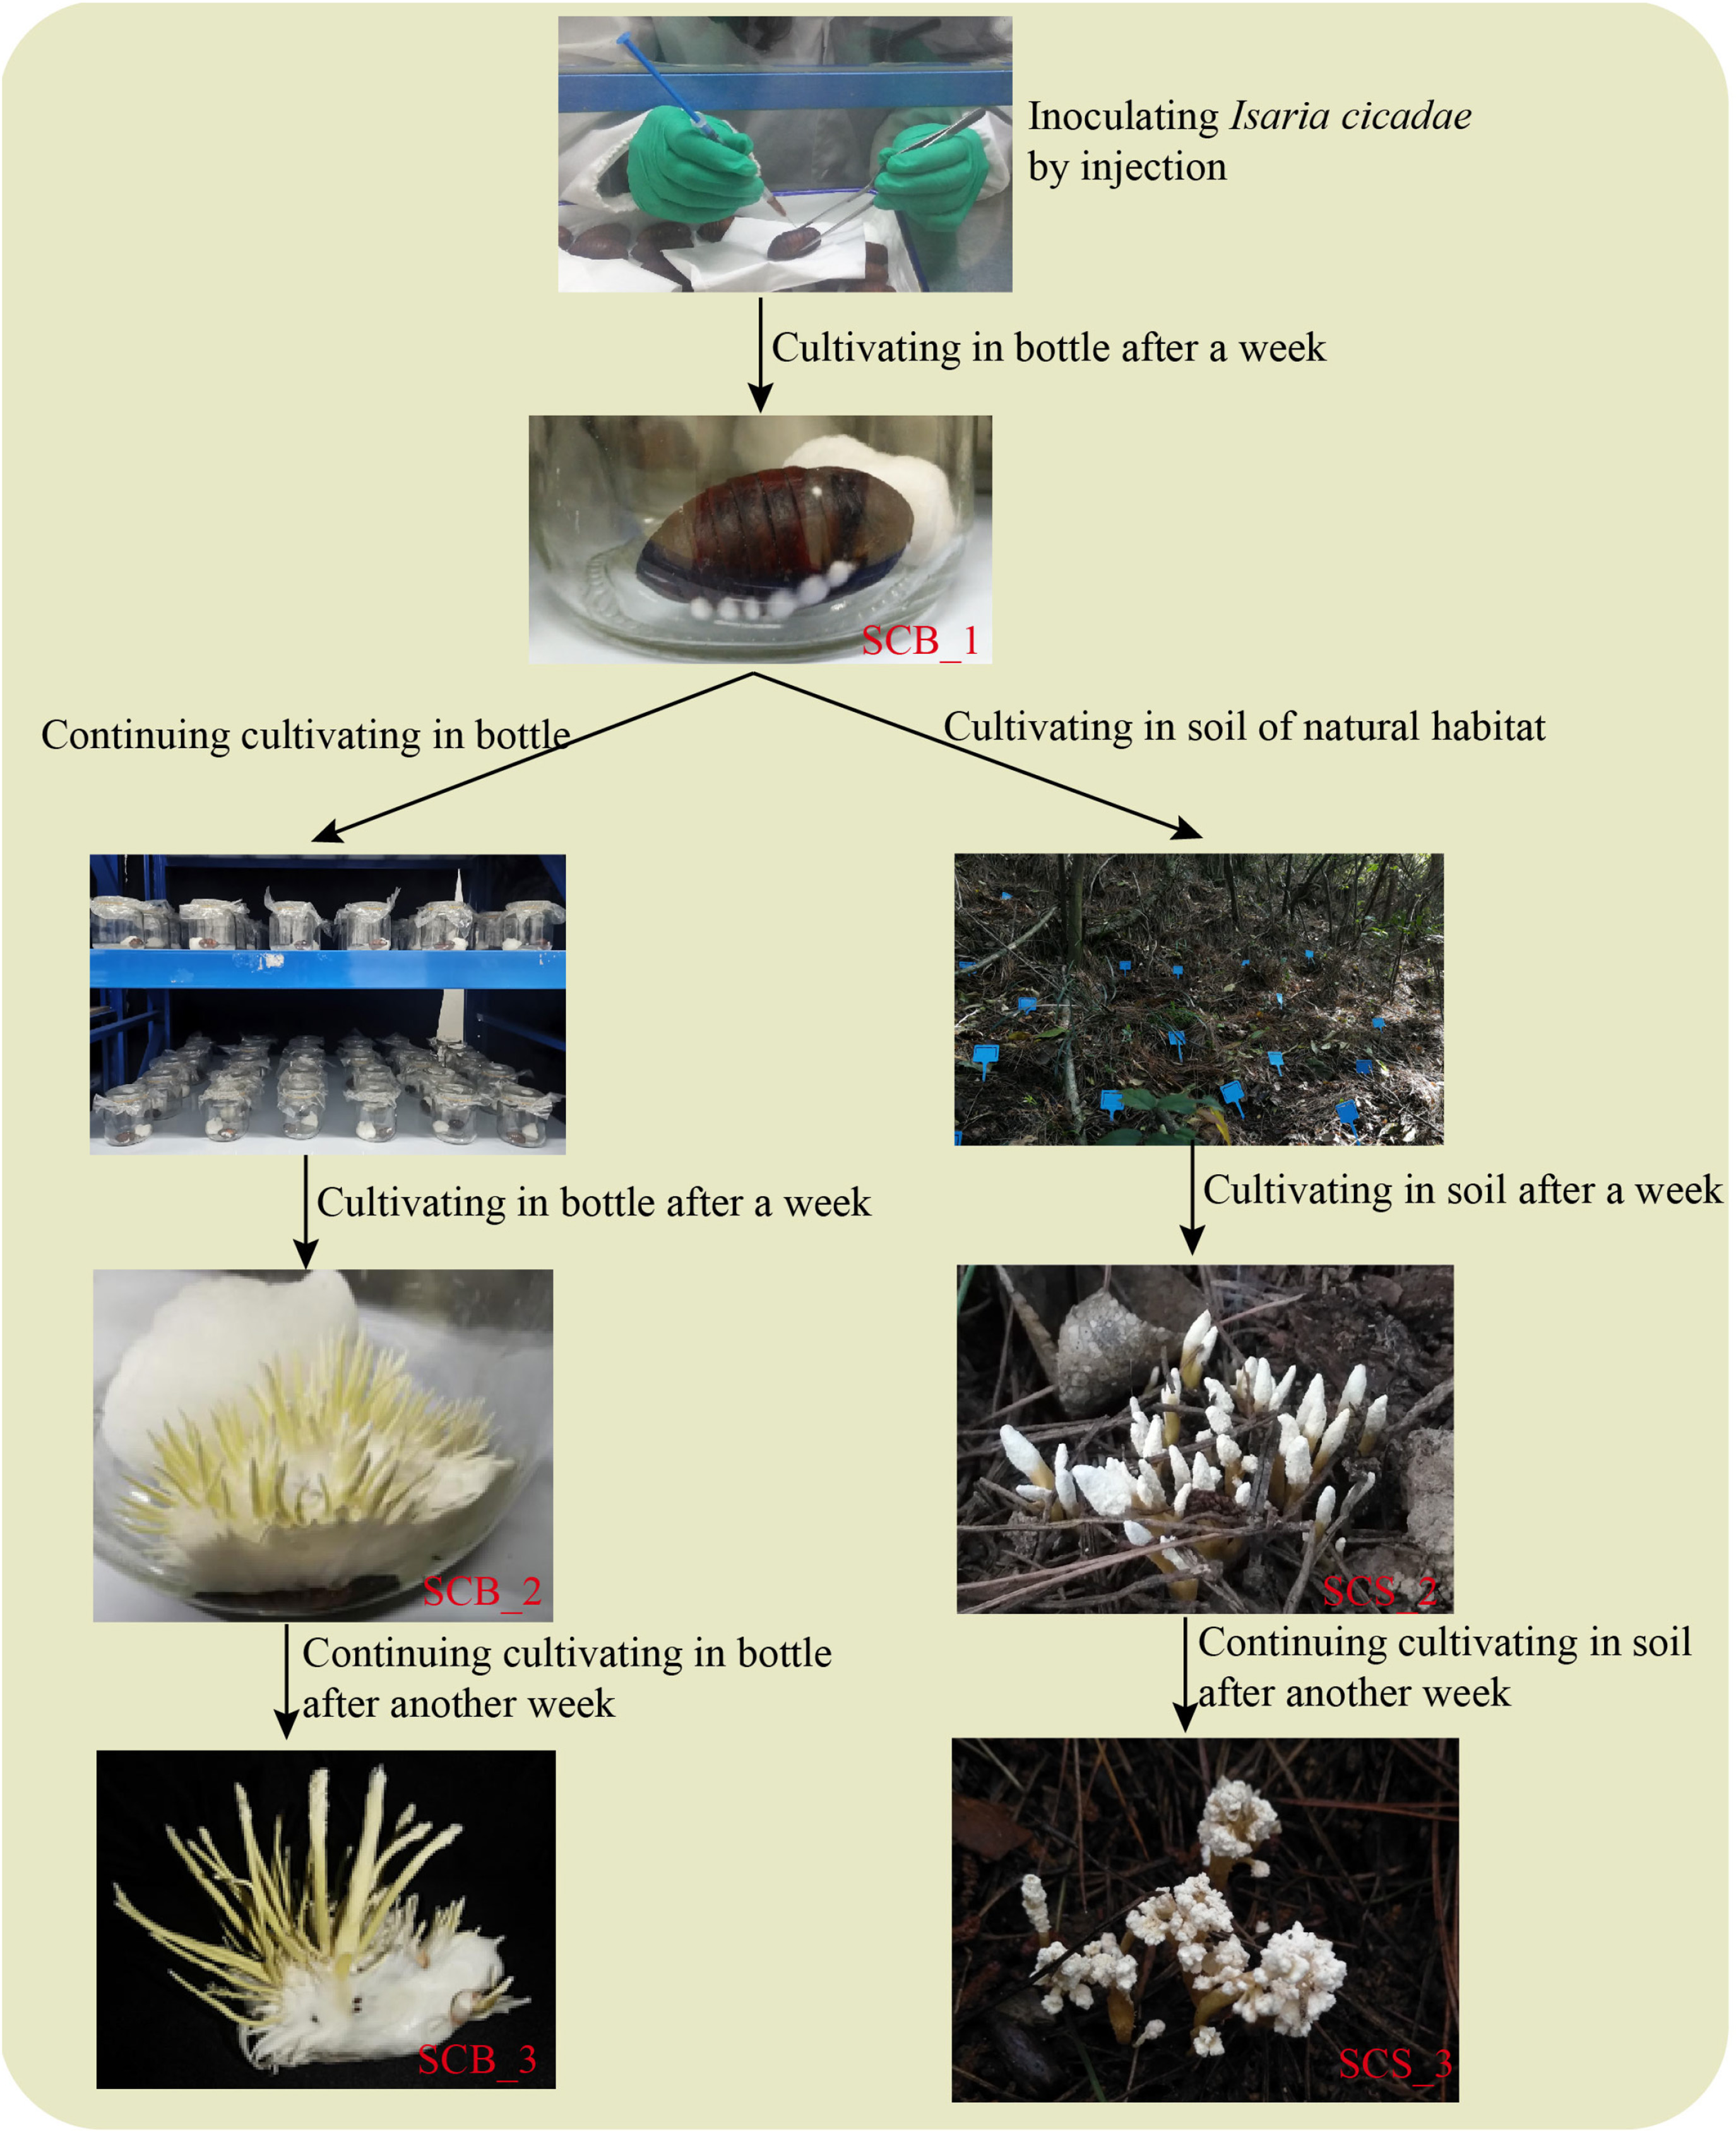
以辽宁省岫岩市人工养殖基地的柞蚕蛹为宿主,75%酒精表面灭菌后接种孢子悬液(每蛹0.02 mL),置于无菌玻璃瓶中25℃培养(每瓶1蛹加无菌湿棉球保湿)。一周后蛹体完全僵化,分组处理:继续玻璃瓶培养(CB组)或转移至贵州大学西校区约100 m²的马尾松林土壤中培养(CS组),蛹体覆土约1.5 cm,间距≥20 cm。
实验一:培养环境对产量的影响
2019年4月,150头柞蚕蛹接种后玻璃瓶培养1周,剔除未僵化个体后,120头僵蛹随机分为6组(CB与CS各3组×20头)。培养2周至子实体成熟后统计结草率(结草蛹数/总蛹数),测量53头CB组与39头CS组蝉花的鲜重、子实体数量、长度及直径,计算相对产量(100×结草率×单株平均鲜重)。
实验二:培养环境对细菌群落及代谢产物的影响
2019年9月重复上述流程,200头僵蛹分组培养后,每周随机取9头菌核(3头/重复)进行细菌群落分析(第1周仅CB组),样本按周次编号(如SCB_2、SCS_2)。CS组蛹体经自来水冲洗后,剥离外部菌丝及子实体,菌核经表面消毒(75%酒精2 min→2.5%次氯酸钠20 s→无菌水冲洗5次)后液氮速冻,-80℃保存备用。第3周收获的子实体80℃烘干粉碎后检测5类代谢物含量。
代谢产物检测
采用日立L-8800氨基酸分析仪(国标GB 5009.124-2016)测定17种氨基酸;比色法测定甘露醇(San et al., 2010);硫酸苯酚法(农业标准NY/T 1676-2008)测多糖;高效液相色谱法(NY/T 2116-2012)检测虫草素与腺苷。
细菌DNA提取与测序
使用E.Z.N.A.® Soil DNA Kit提取DNA,515F/806R引物扩增16S rRNA V4区,Illumina MiSeq平台测序。
生物信息学分析
使用FLASH与QIIME处理原始数据,UPARSE算法(97%相似度)聚类OTU,SILVA数据库注释分类。通过Shannon、Chao1和Coverage指数评估α多样性,PICRUSt预测细菌功能。采用t检验/Mann-Whitney U检验比较组间差异,Spearman分析菌属与代谢物的相关性。
结果
自然生境培养可行性及产量差异
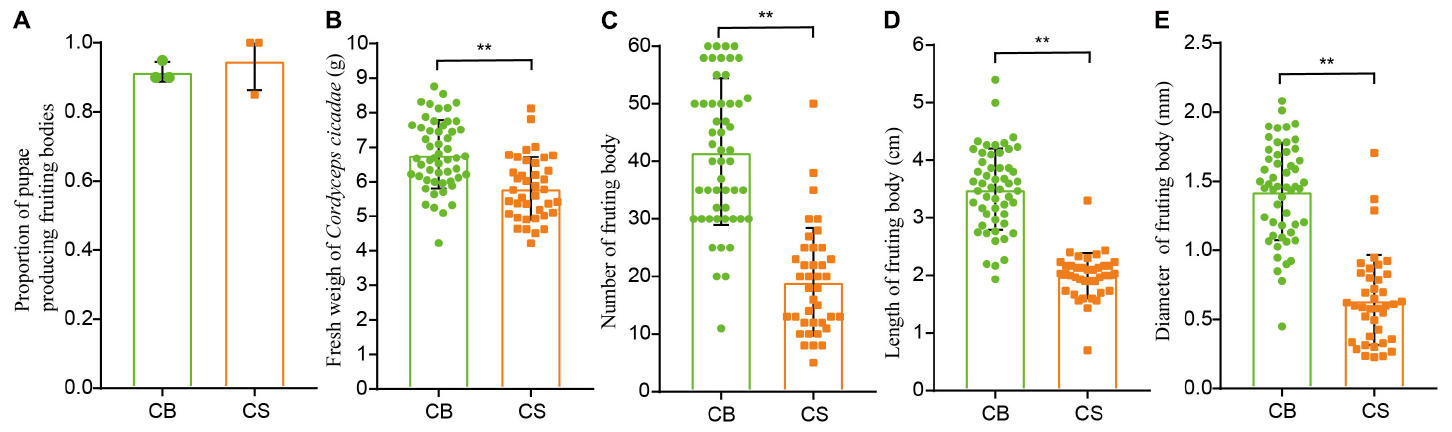
CS组与CB组结草率无显著差异(92±14% vs 95±9%),证实自然生境培养可行性(图2A)。但CS组蝉花鲜重、子实体数量、长度及直径均显著低于CB组(p<0.01,图2B–E),相对产量(534.52 g/100头)亦较低(补充表2),表明玻璃瓶培养更利于生物量积累。
代谢产物含量差异
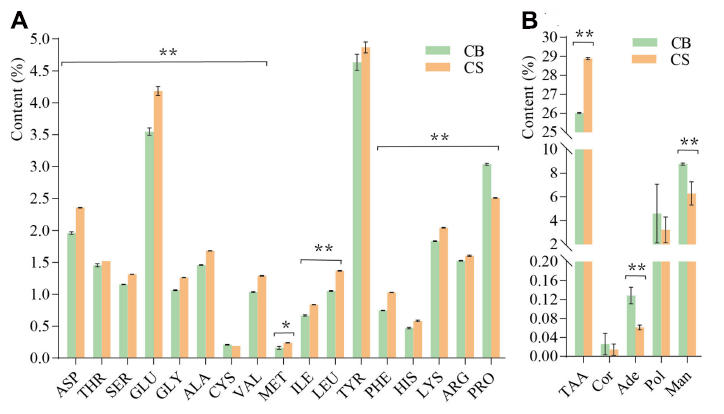
CS组蝉花总氨基酸含量(28.87±0.057%)显著高于CB组(26.01±0.029%,p<0.01,图3B),其中15种氨基酸(如天冬氨酸、苏氨酸等)含量显著升高,仅脯氨酸降低(2.51±0.005% vs 3.04±0.015%,p<0.01)。CS组虫草素与多糖略低,腺苷与甘露醇显著降低(p<0.01,图3B),提示自然生境促进氮化合物合成而抑制碳化合物与核苷积累。
细菌群落特征
测序共获得2,931,602条原始序列,质控后1,465,801条有效序列(每样30,665–92,371条),Coverage指数>0.99(补充表3),稀释曲线表明测序深度充足(补充图1)。
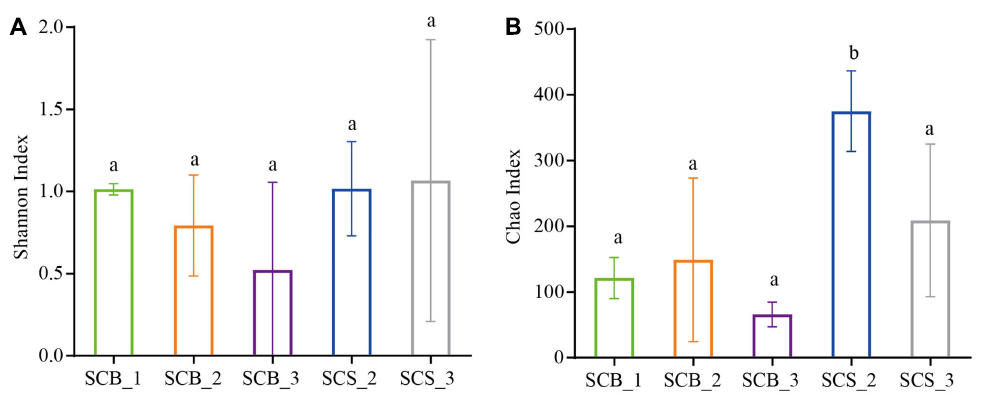
α多样性分析显示两组菌核细菌Shannon指数无显著差异(图4A),但CS组Chao1丰富度指数更高(SCS_2显著高于SCB_2,p<0.05,图4B),表明自然生境培养增加细菌丰富度。
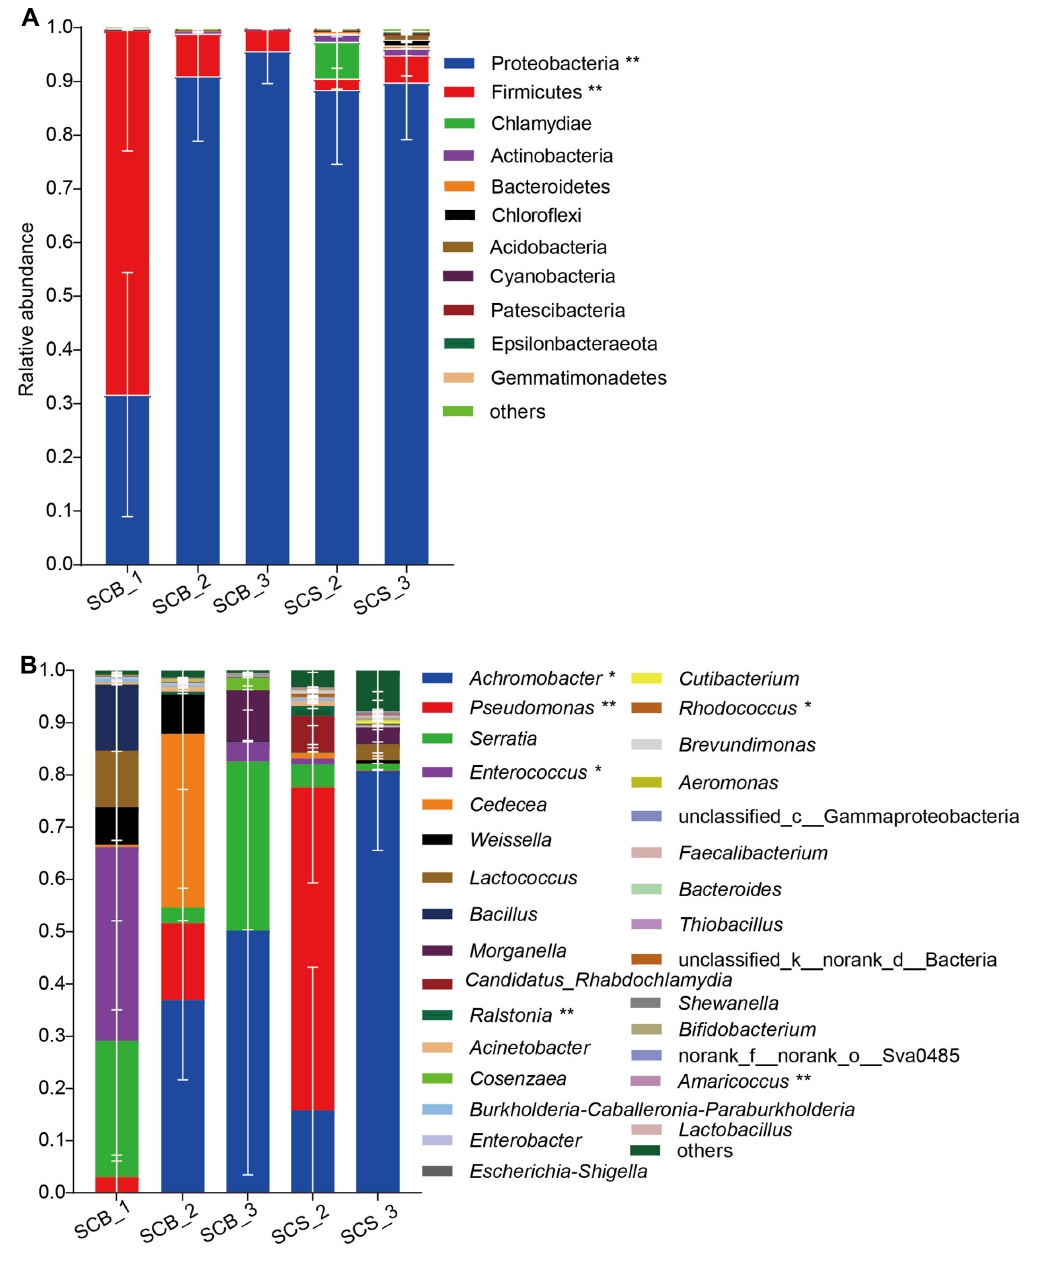
门水平上,变形菌门(Proteobacteria)为优势菌门(31.69–95.66%),SCB_1中厚壁菌门(Firmicutes)占比显著(67.80±22.2%,p<0.01,图5A)。属水平组成差异显著:CB组优势属随生长阶段变化(SCB_1以肠球菌属Enterococcus(37.05±31.08%)和沙雷氏菌属Serratia(26.08±22.96%)为主;SCB_2以无色杆菌属Achromobacter(36.91±15.24%)和西地西菌属Cedecea(33.18±40.63%)为主;SCB_3以无色杆菌(50.24±46.77%)和沙雷氏菌(32.34±56.01%)为主),而CS组SCS_2和SCS_3分别以假单胞菌属Pseudomonas(61.80±18.32%)和无色杆菌(80.75±15.18%)为主(图5B)。无色杆菌相对丰度随生长显著增加(0.02%→80.75%,p<0.05),假单胞菌、红球菌属Rhodococcus等仅在SCS_2中显著富集(p<0.01),西地西菌属则特异性富集于SCB_2(33.18%)。
细菌功能预测
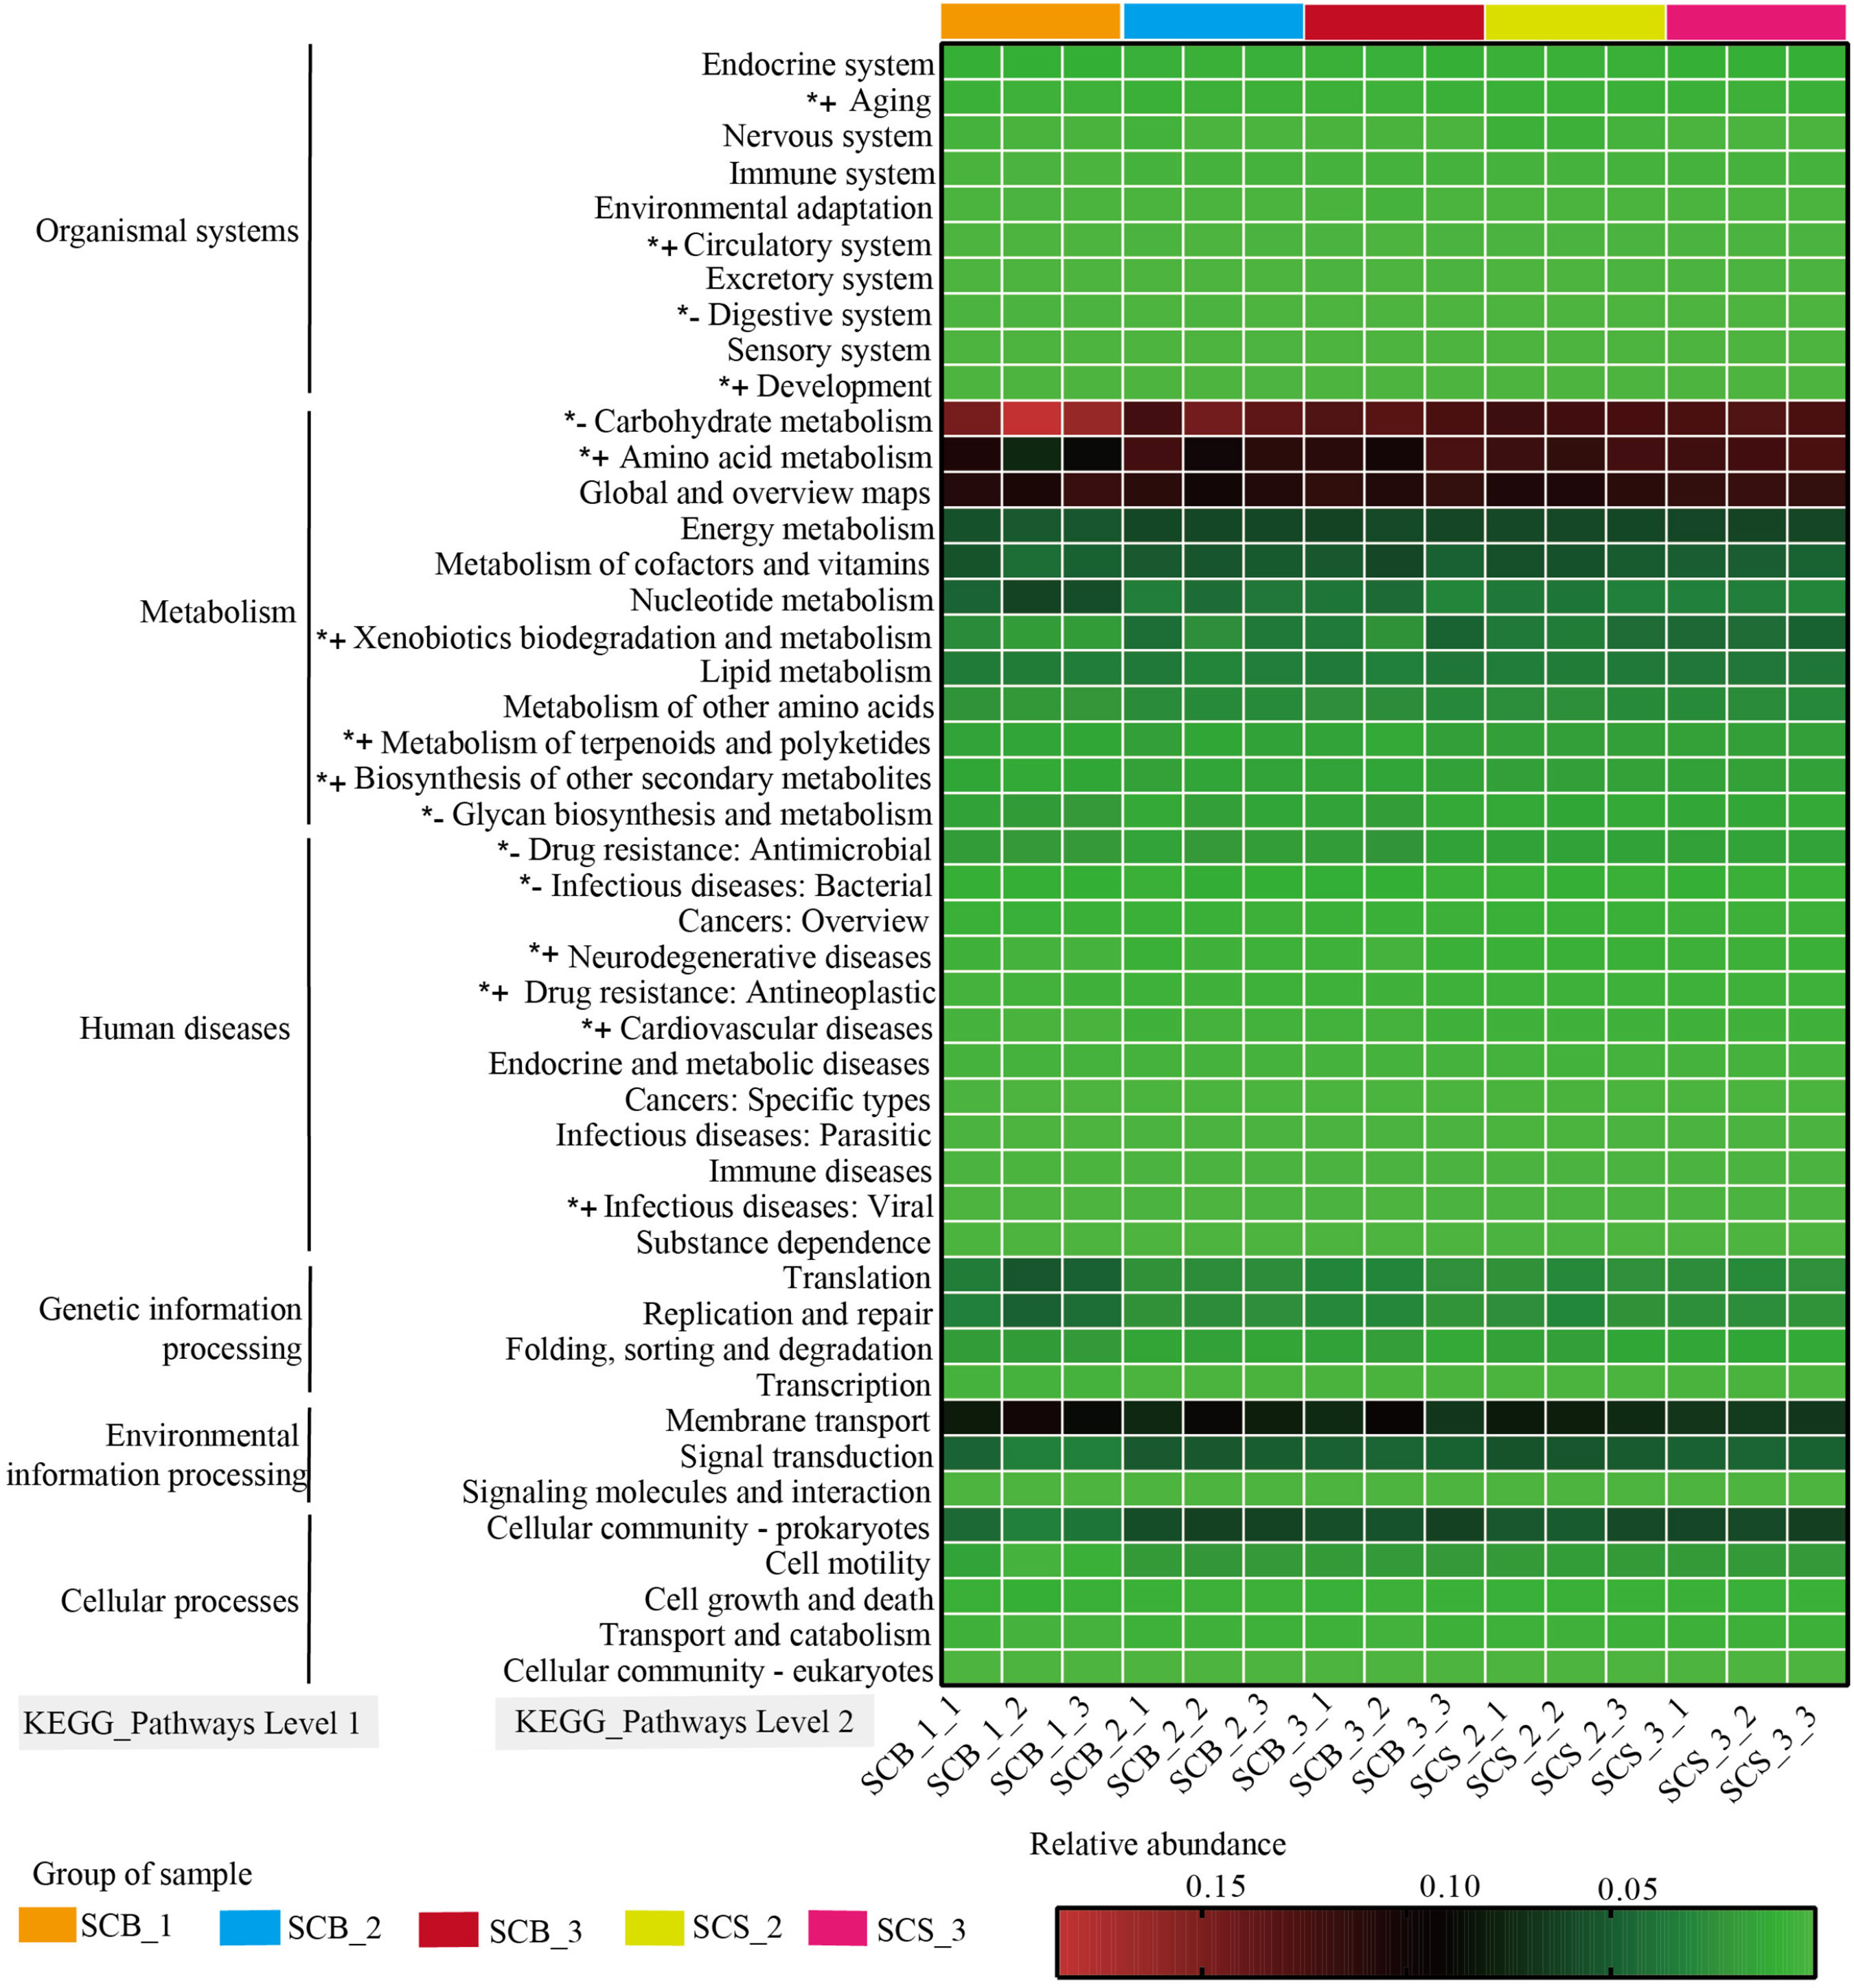
PICRUSt分析显示,KEGG Level 1中代谢功能占比最高(62.80–66.33%),Level 2中碳水化合物代谢(11.98–18.53%)、氨基酸代谢(7.47–12.58%)等通路显著。CS组细菌的糖类合成与碳水化合物代谢功能丰度显著低于CB组(p<0.05),而氨基酸代谢、异生物质降解等通路显著增强(p<0.05,图6),与代谢物变化趋势一致。
菌属-代谢物关联分析
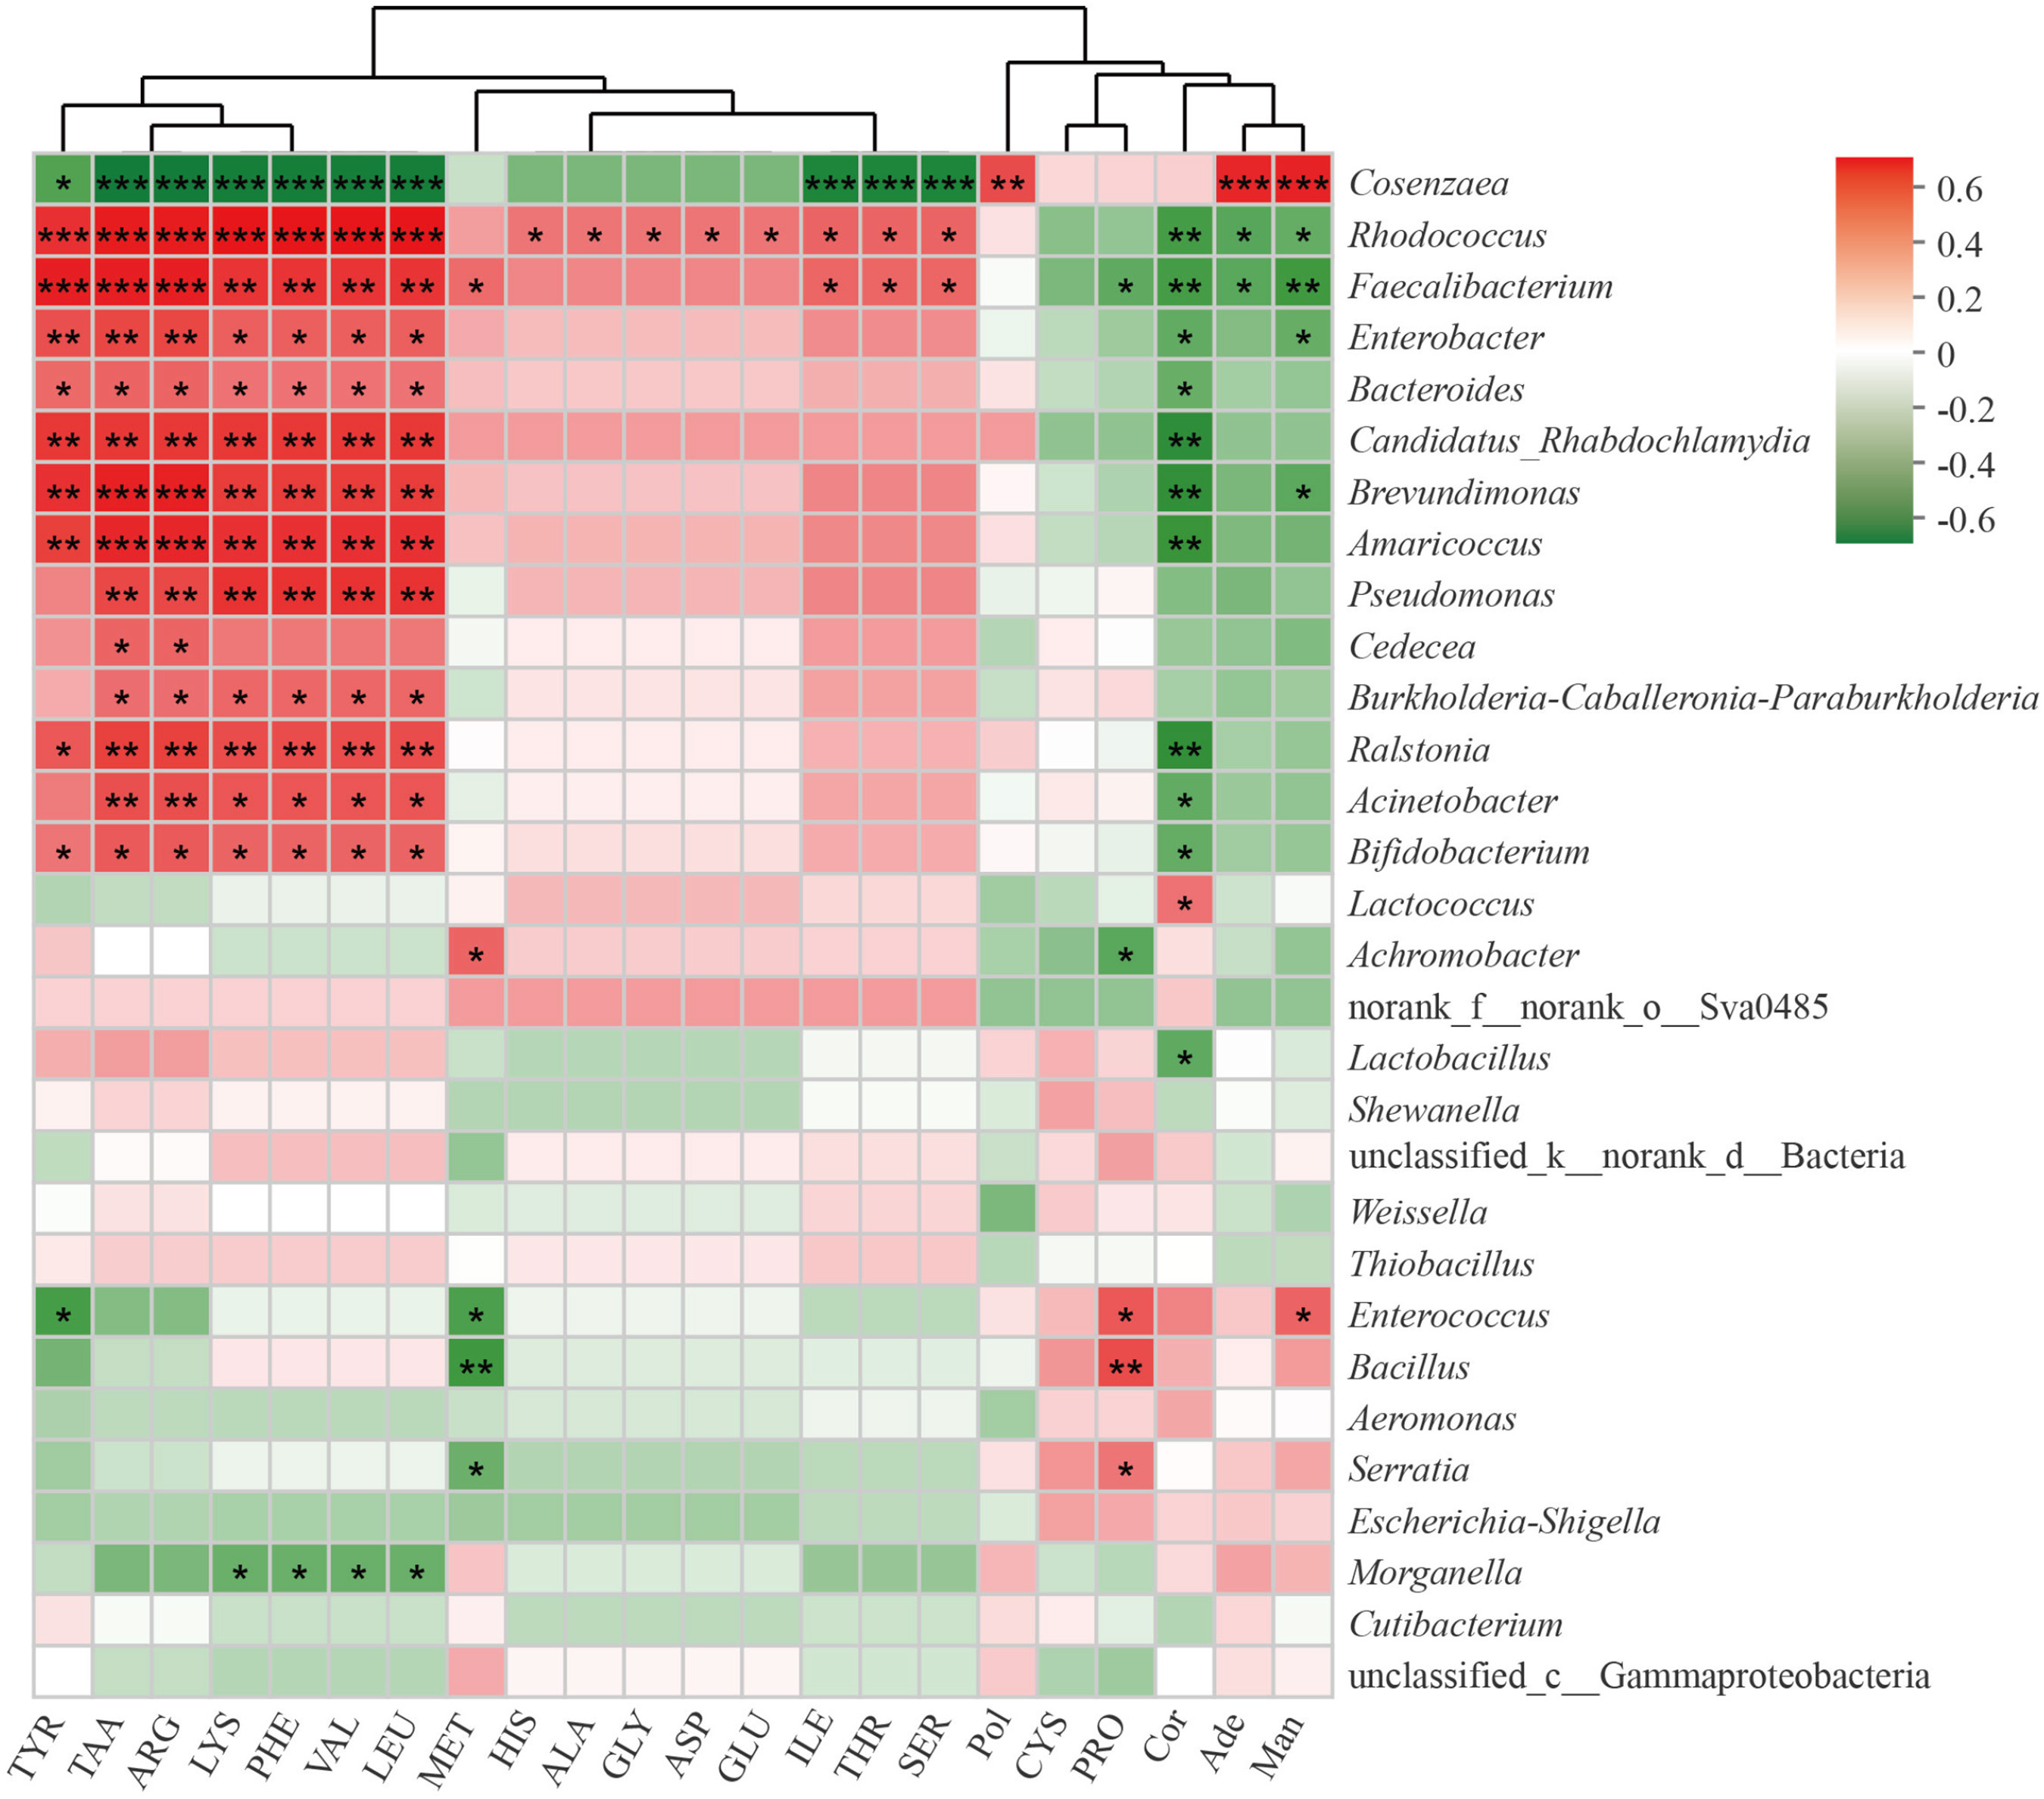
Spearman分析显示,红球菌、粪杆菌属Faecalibacterium等与总氨基酸、酪氨酸等呈显著正相关(p<0.05),与虫草素负相关;假单胞菌、伯克霍尔德菌属Burkholderia与多种氨基酸正相关;肠球菌与脯氨酸正相关;柯森扎菌属Cosenzaea与多糖、腺苷正相关(图7)。
讨论
本研究首次证实蝉花自然生境土壤培养的可行性,但产量低于无菌培养。自然生境可能通过微生物互作调控代谢流向:土壤中假单胞菌等富集促进氮化合物积累,而碳分配至防御系统导致碳化合物减少。菌属-代谢物显著相关性(如红球菌与氨基酸合成正相关)为定向调控提供了靶点。后续可通过分离功能菌株构建合成群落,优化培养体系提升产量与活性成分含量。、
自然生境培养的蝉花虽产量较低,但氨基酸含量显著提升,更贴近野生品质。该方法不仅满足消费者对“道地性”的需求,其潜在的土壤元素循环参与(如碳氮交换)也为虫草菌生态功能研究提供了新视角。未来研究可聚焦功能菌株筛选及其代谢调控机制,为蝉花资源可持续利用提供技术支撑。
数据可用性声明
测序数据存放于NCBI数据库(登录号PRJNA698306)。