安徽农业大学学报, 2024, 51(4): 697-705
Journal of Anhui Agricultural University
[DOI] 10.13610/j.cnki.1672-352x.20240830.020
网络出版时间:2024-09-02 14:40:13
[URL] https://link.cnki.net/urlid/34.1162.s.20240830.1335.040
蝉花优良菌株的选育
纪 伟 1,2,苏文英 1,王一璞 1,刘晓梅 1,任立凯 1*,杨紫唯 2,周祉蕴 2,陈克龙 2*
(1. 连云港市农业科学院,连云港 222000;2. 青海师范大学地理科学学院,西宁 810000)
摘 要:蝉花(Cordyceps chanhua)是一种药食两用虫草科真菌,是食品和保健品领域极具开发潜力的重要新原料。为探究野生蝉花不同分离方式对生物学特性和活性成分的影响,以大别山地区采集的 5 株野生蝉花为研究对象,采用分生孢子分离和组织分离(菌核分离)两种方法对野生蝉花进行分离,获取蝉花菌株 10 株,比较分析不同蝉花菌株的菌落形态、生长速度、子实体产量和活性物质含量等,使用归一化法进行品质综合评价和聚类热图分析。结果表明:分生孢子分离菌株与组织分离的菌株相比,除菌落生长速度外,子实体鲜重、子实体长度、子实体直径、生物学效率和活性成分等各项指标普遍占优,蝉花的菌落生长速度并不能作为菌株优劣的筛选依据,子实体产孢量与生物学效率和活性成分含量呈负相关;经比较分析发现 4 株综合品质较好的菌株,分别为 IC1-1、IC3-1、IC1-2 和 IC2-1,子实体湿重在 12.17~15.31 g 之间,子实体长度在 6.20~7.00 cm 之间,子实体直径在 2.15~2.75 mm之间,子实生物学效率在 40.57%~51.03%之间,腺苷含量在 1.76~1.89 mg·g -1 之间,多糖含量在 46.1~50.1 mg·g -1 之间,N6-(2-羟乙基)腺苷含量在 1.21~1.33 mg·g -1 之间。该研究为蝉花资源保护和品种创制提供了理论依据。
关键词:蝉花;孢子分离;组织分离;活性物质;聚类热图;归一化法
中图分类号:S567.3
文献标识码:A
文章编号:1672-352X (2024)04-0697-09
Breeding of excellent strains of Cordyceps chanhua
JI Wei1,2, SU Wenying1, WANG Yipu1, LIU Xiaomei1, REN Likai1, YANG Ziwei2, ZHOU Zhiyun2, CHEN Kelong2
(1. Lianyungang Academy of Agricultural Science, Lianyungang 222000; 2. College of Geographical Science, Qinghai Normal University, Xining 810000)
Abstract: Cordyceps chanhua is a medicinal and edible fungus in the Cordyceps family, and it is an im- portant new raw material with great development potential in the field of food and health products. This re- search aimed to assess the impact of isolation methods on both the biological characteristics and the active in- gredients of this wild species. Five distinct wild C. chanhua specimens from the Dabie Mountains were exam- ined using conidiospore and tissue (sclerotium) separation methods, and 10 strains were successfully isolated. A comparative analysis was conducted on parameters such as colony morphology, growth rate, yield of fruiting body, and active substance content. The quality of fruiting body was comprehensively evaluated using normal- ization method and cluster heat map analysis. As per result findings, the strains isolated from conidiospores exhibited overall superiority in key indicators (excluding colony growth rate) such as weight, length, diameter of fruiting body, biological efficiency and active ingredients. Colony growth rate was deemed inappropriate for strain quality screening. Notably, there was an inverse correlation between the spore yield of fruiting body and biological efficiency, and active ingredient content. Four strains with excellent comprehensive characteristics were screened, including strains IC1-1, IC3-1, IC1-2 and IC2-1. The wet weight of the fruiting body ranged from 12.17 to 15.31 g; the length of the fruiting body ranged from 6.20 to 7.00 cm; the diameter of the fruiting body ranged from 2.15 to 2.75 mm; the biological efficiency of the fruiting body ranged from 40.57% to 51.03%; the adenosine content ranged from 1.76 to 1.89 mg·g -1; polysaccharide content ranged from 46.1 to 50.1 mg·g -1, and N6-(2-hydroxyethyl) adenosine content ranged from 1.21 to 1.33 mg·g -1. This study can provide atheoretical basis for the protection of C.chanhua resources and the creation of varieties.
Key words: Cordyceps chanhua; conidiospore separation; tissue separation; active substances; cluster heatmap; normalization method
收稿日期: 2023-06-07
基金项目: 江苏现代农业(蔬菜)产业技术体系(JATS[2022]177),连云港市财政专项(QNJJ2410),连云港市食用菌全产业链建设项目(连农复(2023)14 号)和连云港市科协软课题项目(Lkxzd2405,Lkxyb23027)共同资助。
作者简介: 纪 伟,博士研究生,助理研究员。E-mail:jiwei100500@163.com
* 通信作者: 任立凯,副研究员。E-mail:2949823@qq.com 陈克龙,教授。E-mail:ckl7813@163.com
蝉花(Cordyceps chanhua)是虫草科、棒束孢属真菌[1],有国宝虫草金蝉花的美誉[2],具有一千多年的食药用历史,野生资源在广东、福建、江苏、安徽和云南等省都有分布[2],古典医学专著《雷公炮炙论》[3]、《图经本草》[4]和《本草纲目》[5]等均有记载。但野生蝉花存在着资源稀少、易腐烂霉变和重金属超标等问题,甚至出现村民误食假蝉花, 国宝虫草金蝉花躺枪的情况[6]。蝉花子实体(人工培植)于 2021 年被国家卫生健康委员会批准为“新食品原料”[7],蝉花正式可以以合法的身份进入食品工业深加工领域。经人工栽培的蝉花,其子实体不仅含有腺苷、多糖和虫草素等活性成分[8-10,13],还含有丰富的 N6-(2-羟乙基)腺苷(HEA)、D-甘露醇和微量元素等物质[11-13],具有改善肾功能、降尿酸、增强免疫力和助睡眠等广泛的药理功能[14-17], 是食品和保健品领域极具开发潜力的重要新原料。
组织分离是获取食用菌纯培养物的主要方法, 分离得到的是多个菌丝细胞萌发的菌丝混合物[18]。遗传类型属于同宗结合的物种,单孢可以出菇,如次级同宗结合类型的双孢蘑菇 Agaricus bisporus 和初级同宗结合遗传类型的草菇 Volvariella volvacea, 通过单孢出菇试验可获得出菇性能优良的新菌株[19]。贺新生等[20]发现羊肚菌不同孢子萌发出来的菌丝会发生大量的自身卷曲、相互缠绕等现象,无法正常融合甚至发生死亡,导致在栽培过程中出现产量、性状和质量等不稳定问题,采用单孢分离方式可有效避开这一问题。单孢菌株的形态、质量均较一致,多孢分离物、混合播种的子实体形态变化大、产量差异显著[21]。目前蝉花纯培养物的获得借鉴于分离担子菌的经验和技术,以组织分离为主。蝉花属于单孢可孕的遗传类型,同一个孢子萌发的菌丝相互接触融合(自融合)是其生长发育成子实体至关重要的步骤,关于蝉花不同分离方式的研究还鲜见报道,而菌株的优劣评价不仅仅要考虑生物转化率等生物学指标,还要考虑其活性成分指标。郭玉峰等[22]采用归一化法对采集分离自泰山地区的 14 株野生蛹虫草菌株进行综合品质评价,筛选到2 株综合性状优良的菌株,韩利红等[23]采用归一化法对不同蛹虫草菌株进行综合品质评价,选育出活性成分分布均匀和综合得分优秀的蛹虫草菌株。
目前对蝉花的研究主要集中资源调查[24]、分离鉴定[25]、蝉花基质的应用[26]和蝉花的药理药效方面[27], 对野生蝉花不同分离方式生物学特性和活性成分比较方面研究还鲜见报道。鉴于此,本研究通过不同分离方式对野生蝉花进行分离,获取蝉花菌株,采用归一化法对不同蝉花菌株的菌落形态、生长速度、子实体产量和活性物质含量进行综合比较,探究不同分离方式对蝉花菌株的生物学指标和活性成分含量的影响,以期获得综合品质优异的蝉花菌株。
1 材料与方法
1.1 材料
1.1.1 菌株来源
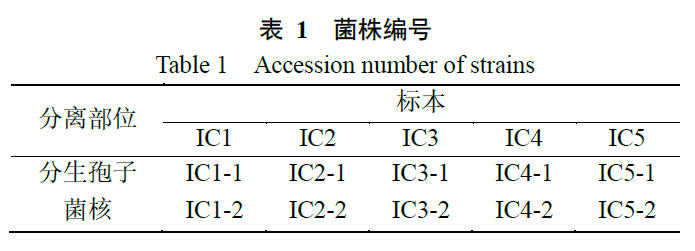
本试验以安徽省六安市大别山区采集获得的 5 株野生蝉花为材料,分别采用分生孢子分离和组织分离获取 10 个菌株,详见表 1。经鉴定均为蝉花菌株,保存于连云港市农科院食用菌菌种库。
1.1.2 培养基
母种试管培养基:PDA 培养基,马铃薯 200 g(切片煮汁过滤),葡萄糖 20 g,琼脂粉 20 g,纯化水补至 1 000 mL,pH 值自然;
液体培养基:麦芽糖 20 g,蛋白胨 5 g,酵母浸粉 5 g,纯化水 1 000 mL,pH 自然;
出草培养基:燕麦 20 g,小麦 10 g,纯化水 45 mL。
1.1.3 主要仪器及试剂
Agilent1200 高效液相色谱仪,美国 Agilent 公司;723N 可见分光光度计,上海佑科仪器仪表有限公司;SW-CJ-1CU 超净工作台,苏州安泰;MD-550 离心机,德国 Eppendorf 公司。
葡萄糖、甲醇、苯酚、硫酸、无水乙醇,国药集团化学试剂有限公司;麦芽糖、蛋白胨,生工生物工程(上海)股份有限公司;酵母浸粉、琼脂粉, 北京奥博星生物技术有限责任公司;腺苷标准品(110879- 202204),中检索; N6-(2-羟乙基)腺苷标准品(SH9130,HPLC≥98%),索莱宝。
1.2 方法
1.2.1 菌落生长速度
将各菌株分生孢子点接于直径 90 mm 的培养皿中,PDA 培养基,25 ℃避光培养 5 d,测量菌落直径,菌落生长速度即菌落直径除以培养时间(d)。每个试验设定 2 个重复。
1.2.2 栽培出草试验
将蝉花母种斜面试管中的蝉花孢子刮取到液体培养基中,在温度 25 ℃、转速160 r·min -1 避光培养 3 d,按 10%的接种量,将蝉花液体菌种接种至灭菌后的出草培养基中,25 ℃避光培养 3~4 d,蝉花菌丝发菌完成,在温度 21 ℃、光照 100 lx 和相对湿度 70%~85%的条件下培养, 期间保持室内通风,待蝉花子实体顶端呈淡白色开始产生分生孢子即为子实体成熟标志,开始采收。采收后测定子实体鲜重、子实体长度和子实体直径, 并计算生物学效率。每个样本设定 2 个重复试验。
1.2.3 活性物质含量测定[28]
(1)腺苷含量测定。精密称取 1 g 蝉花子实体粉末(精确至 0.001 g),置于容量瓶中(50 mL),加入约 45 mL 提取液,超声提取 80 min。取出后加入提取液定容至刻度,混匀后以 3 000 r·min -1 离心 3 min。上清液经 0.45 和 0.22 µm 两层滤膜过滤后供液相色谱分析用。液相色谱参考条件为:色谱柱 C18(4.60 mm × 250 mm ,5 µm),柱温为室温,紫外检测器检测波长 254 nm,流动相甲醇:0.01 mol·L -1,磷酸二氢钾溶液 10∶90,流速 1.000 mL·min -1,进样量 20 µL,以试样峰面积与标准比较定量。每个试验重复 2 次。
(2)N6-(2-羟乙基)腺苷(HEA)含量测定。精密称取 1 g 蝉花子实体粉末 0.200 0 g,准确称定于20 mL 具塞试管中,准确加入 10.0 mL 10%甲醇水溶液,超声提取 30 min,0.22 µm 滤膜过滤后供液相色谱分析用。液相色谱条件为:色谱柱 C18 柱(4.6 mm×150 mm,5 µm),柱温 35 ℃, 检测波长 268 nm,流动相乙腈-0.01 mol·L -1 、磷酸二氢钾(10∶90),流速 1.000 mL·min -1,进样量 10 µL,根据试样峰面积与标准峰面积比对进行定量。每个试验重复 2 次。
(3)多糖含量测定。精密称取 1 g 蝉花子实体粉末,加入 50 mL 蒸馏水,回流提取 1 h,滤过, 滤液转移至容量瓶中(50 mL),加水至刻度,并摇匀。精密量取 10 mL,加乙醇调节至 70%乙醇溶液后,放入 4 ℃冰箱醇沉 4 h,取出,5 000 r·min -1 离心,倾去上清液,沉淀加水溶解,转移至 50 mL 量瓶,加水至刻度,摇匀。向 15 mL 具塞试管中,精密移取供试品溶液 0.1 mL,加蒸馏水 1.9 mL,摇匀,测定吸光值,根据标准曲线回归方程,y=0.658 4 + 0.023 6,R2=0.999 2,计算样品粗多糖含量。每个试验重复 2 次。
(4)活性成分综合分值 D=(d1×d2×d3×…× dm)1/m,其中 d 代表各指标,m 代表指标的数量[29]。
1.2.4 品质综合评价
采用最大-最小归一化算法 a=(X-Xmin)/(Xmax-Xmin)进行归一化法处理[30-32],以消费者和生产者对各成分的重视程度给予加权数, 然后计算品质的综合分值(Y)。Y = (a1×b1 + a2×b2 +……+ ai×bi),式中 ai 为第 i 个成分经归一化法处理的数值;bi 为相应的加权数,b1,2,3(菌落生长速度, 子实体直径,子实体长度)=0.05,b4,6(生物学效率, 多糖)=0.275,b5,7(腺苷,N6-(2-羟乙基)腺苷)=0.1。
1.2.5 数据处理
采用 SPSS 和 Excel 软件对数据处理分析,采用 Duncan 新复极差法对组间差异显著性进行分析,以 P<0.05 为差异具有统计学意义; 采用 Photoshop 软件处理图片,利用 Origin9.1 软件对所得数据作图和聚类分析。
2 结果与分析
2.1 野生蝉花菌株分离及保存
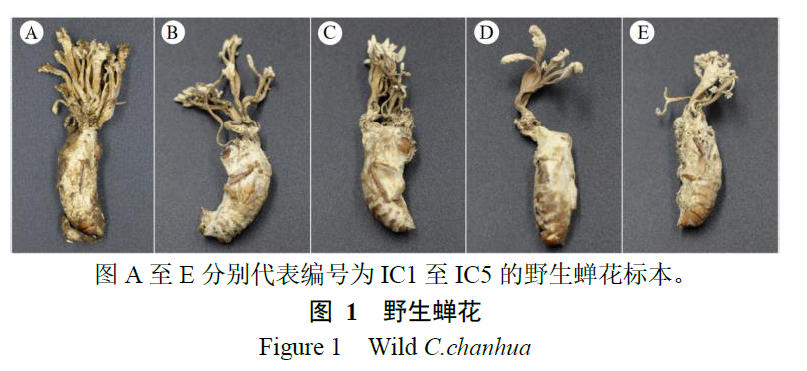
本研究采集的野生蝉花标本详见图 1。生境植被类型以毛竹林为主,均为蝉的幼虫阶段被蝉棒束孢侵染形成的野生蝉花,虫体饱满、坚硬,外观个体及“花冠”完整,子实体顶端含灰白色粉状分生孢子,其中标本 IC1(图 1A)、IC2(图 1B)和 IC3(图 1C)子实体根部分叉较多,而标本 IC4(图 1D) 和 IC5(图 1E)子实体根部未分叉或分叉少,子实体中部开始出现较多分叉。
2.2 蝉花菌落特征和液体菌种特征
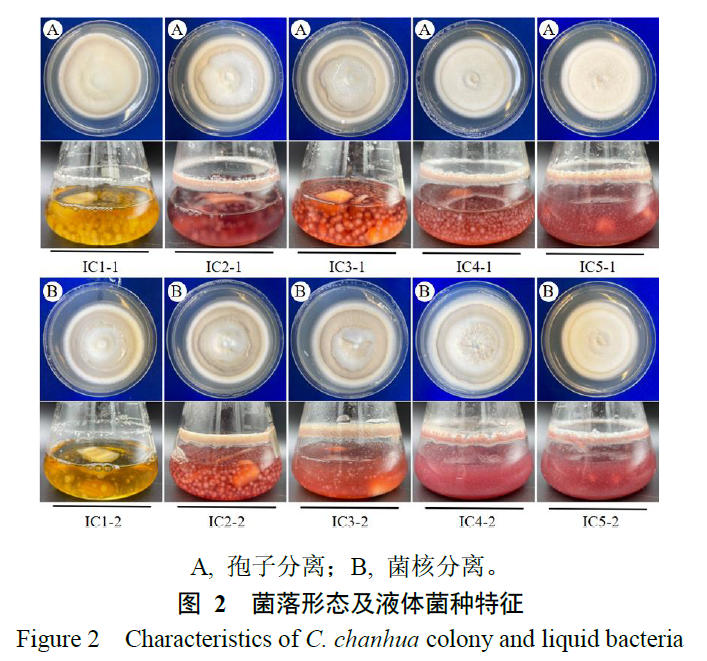
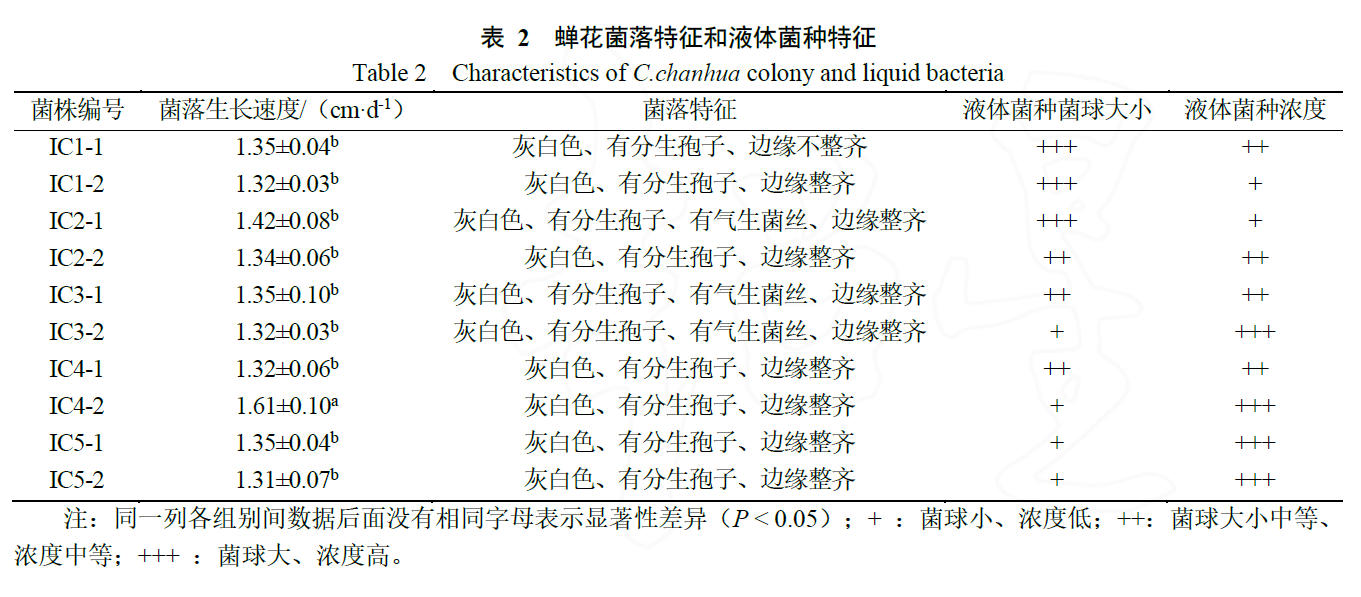
由图 2 和表 2 可知,在 10 株蝉花菌株中,菌株IC4-2 菌落生长速度显著快于(P<0.05)其他 9 个菌株,而 9 个菌株 IC1-1、IC1-2、IC2-1、IC2-2、IC3-1、IC3-2、IC4-1、IC5-1 和 IC5-2 的菌落生长速度没有显著性差异(P>0.05)。菌落特征观察发现,所有菌株表面均有灰白色粉状分生孢子,菌株 IC1-1 菌落边缘不整齐,菌株 IC2-1、IC3-1 和 IC3-2 菌落表面有气生菌丝。液体菌种特征观察发现,菌株 IC3-2、IC4-2、IC5-1 和 IC5-2 菌球小,菌株 IC2-2、IC3-1和 IC4-1 菌球中等,菌株 IC1-1、IC1-2 和 IC2-1 菌球大;菌株 IC1-2 和 IC2-1 菌种浓度低,菌株 IC1-1、IC2-2、IC3-1 和 IC4-1 菌种浓度中等,菌株 IC3-2、IC4-2、IC5-1 和 IC5-2 菌种浓度高。
2.3 栽培出草试验
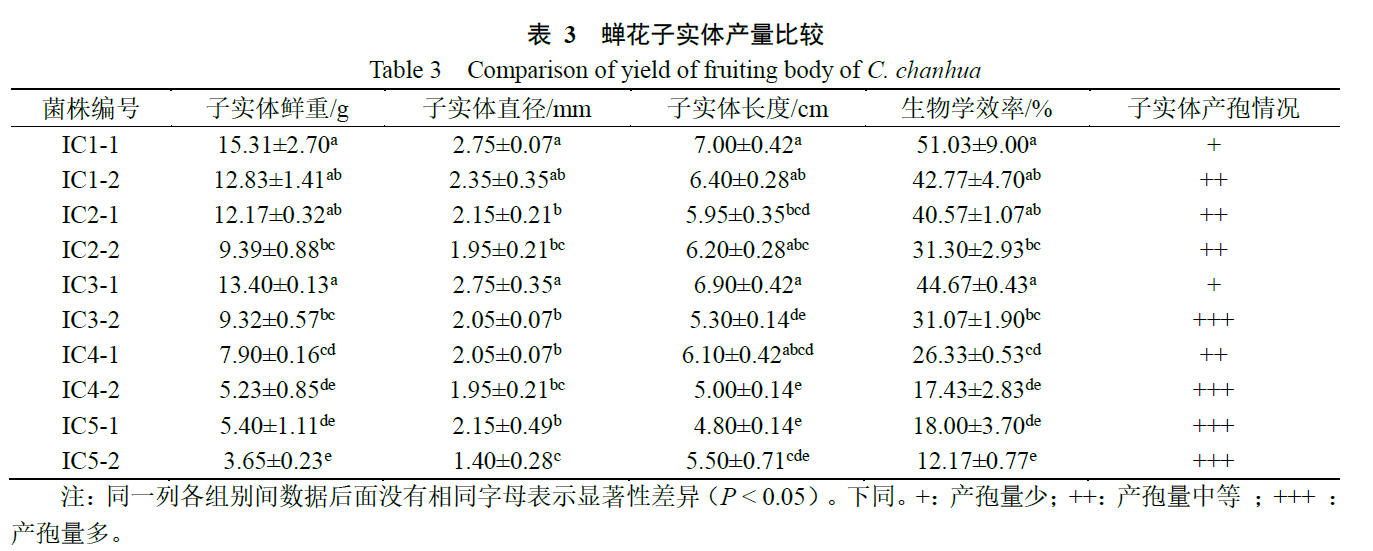
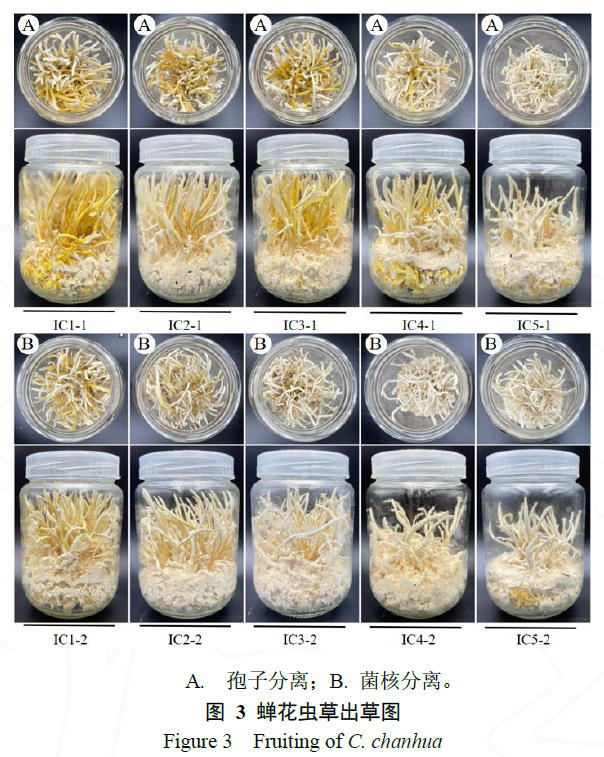
对分离的 10 个蝉花菌株进行出草试验,结果(表 3 和图 3)显示,子实体鲜重和生物学效率方面,菌株 IC1-1 最高,分别为(15.31±2.7 0)g 和(51.03±9.00 )%,显著高于(P<0.05)菌株 IC2-2、IC3-2、IC4-1、IC4-2、IC5-1 和 IC5-2 ,但与菌株IC3-1、IC1-2 和 IC2-1 差异不显著(P>0.05),分生孢子分离菌株普遍优于菌核分离的菌株,但多数没有显著性差异。子实体直径方面,菌株 IC1-1 和IC3-1 最大,分别为(2.75±0.07 )和(2.75±0. 35) mm ,显著高于(P<0.05)菌株 IC2-1、IC2-2、IC3-2、 IC4-1、IC4-2、IC5-1 和 IC5-2,但与菌株 IC1-2 差异不显著(P>0.05),分生孢子分离菌株普遍优于组织分离(菌核分离)的菌株。子实体长度方面, 菌株 IC1-1 最长,为(7.00±0.42 )cm,显著长于(P<0.05)菌株 IC2-1、IC3-2、IC4-2、IC5-1 和 IC5-2,与菌株 IC3-1、IC1-2、IC2-2 和 IC4-1 差异不显著(P>0.05),但并没有明显表现分生孢子分离菌株优于菌核分离菌株的规律。子实体产孢情况观察发现, 菌株 IC1-1 和 IC3-1 产孢量少,菌株 IC1-2、IC2-1、IC2-2 和 IC4-1 产孢量中等,菌株 IC3-2、IC4-2、IC5-1 和 IC5-2 产孢量多。
2.4 活性物质测定
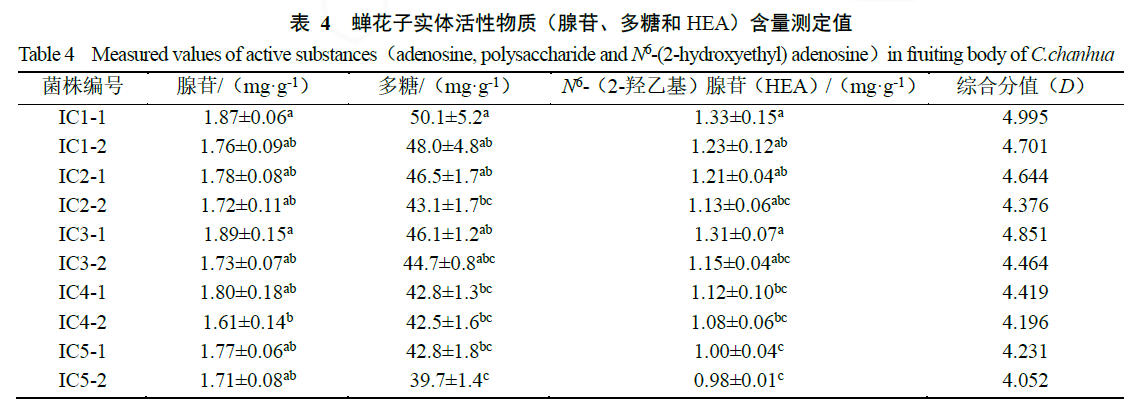
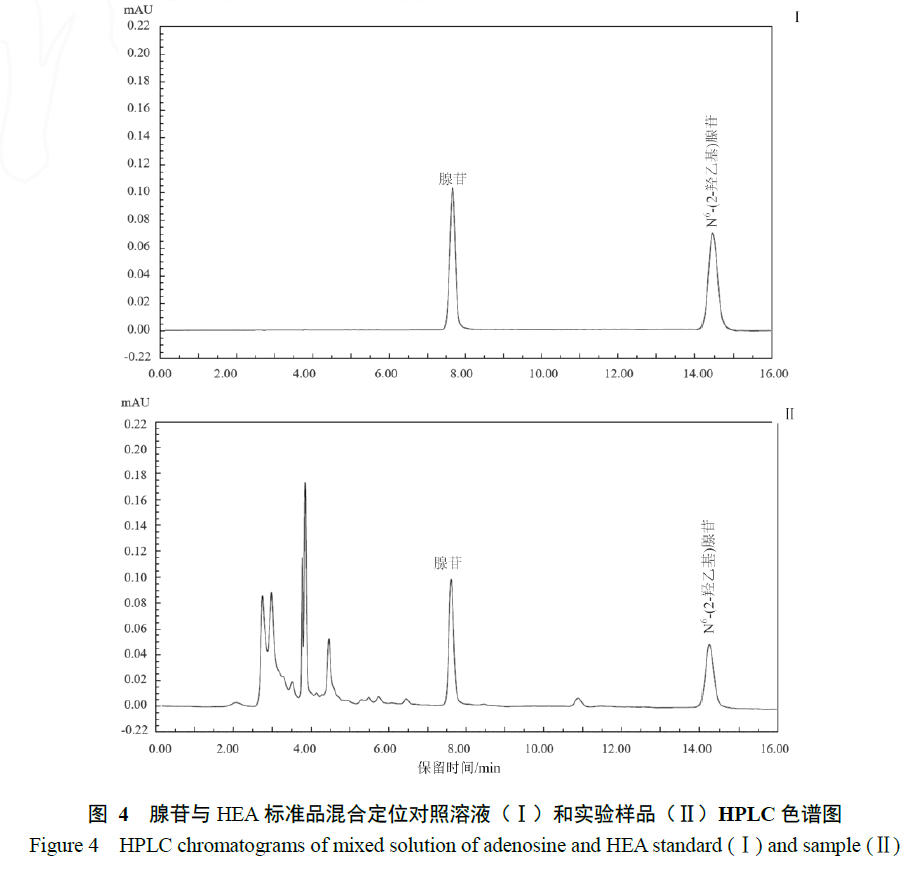
为了探究蝉花不同分离方式对蝉花菌株活性物质含量的影响,对不同菌株培育出的子实体进行活性成分测定。图 4 为腺苷与 HEA 标准品混合定位对照溶液(Ⅰ)和实验样品(Ⅱ)HPLC 色谱图, 蝉花子实体活性物质(腺苷、多糖、HEA)含量测定值详见表 4。腺苷含量在 1.61~1.89 mg·g -1,菌株IC3-1 最高,为(1.89±0.15 )mg·g -1,与其他菌株差异不显著(P>0.05);多糖含量在 39.7~50.1 mg·g -1,菌株 IC1-1 最高,为(50.1±5.2 )mg·g -1,显著高于菌株 IC2-2、IC4-1、IC4-2、IC5-1 和 IC5-2(P<0.05),与菌株 IC1-2、IC2-1、IC3-1 和 IC3-2 差异不显著(P>0.05);HEA 含量在 0.98~1.33 mg·g -1,菌株 IC1-1最高,为(1.33±0.15 )mg·g -1,显著高于菌株 IC4-1、IC4-2、IC5-1 和 IC5-2(P<0.05),与菌株 IC1-2、IC2-1、IC2-2、IC3-1 和 IC3-2 差异不显著(P>0.05)。对 3 种活性物质(腺苷、多糖和 HEA)进行综合评价,根据综合分值(D)排名依次为 IC1-1>IC3-1> IC1-2 > IC2-1> IC3-2 >IC4-1 > IC2-2 > IC5-1 > IC4-2>IC5-2。
2.5 虫草菌株品质综合评价
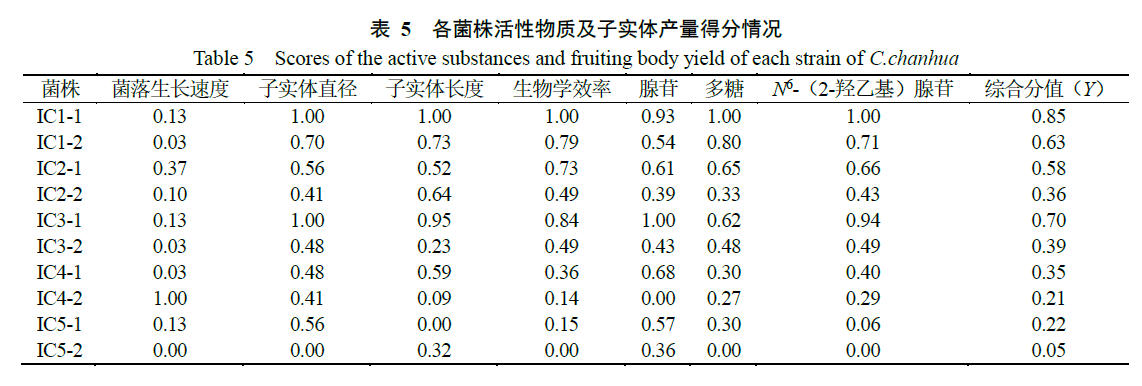
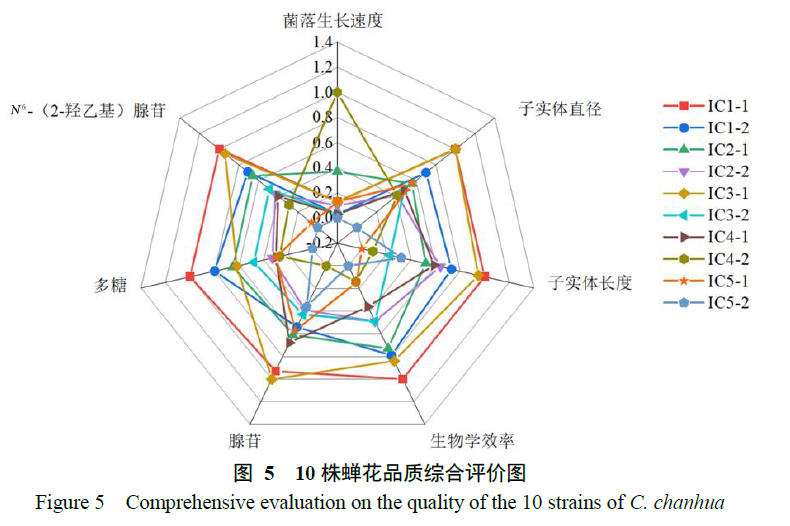
采用最大-最小归一化算法对 10 株蝉花菌株的生物学效率、子实体长度、直径和各类活性物质进行品质综合评价。结果(表 5)显示,各菌株综合分值 Y 大小依次为 IC1-1>IC3-1>IC1-2>IC2-1> IC3-2>IC2-2>IC4-1>IC5-1>IC4-2>IC5-2,菌株IC1-1 最优。雷达图直观反映出各菌株产量和活性物质分布情况,从图 5 中可以看出菌株 IC1-1 和IC3-1 各类物质分布相对于其他菌株更加均匀,其综合性状更加优良;菌株 IC4-2 的菌落生长速度明显高于其他菌株。
2.6 聚类热图分析
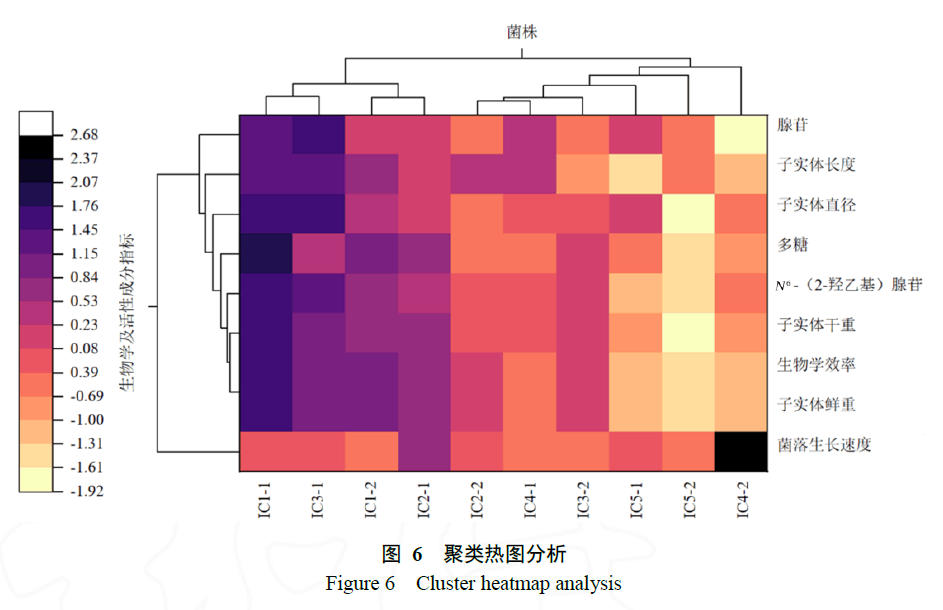
将不同菌株测定的蝉花生物学指标(菌落生长速度、子实体鲜重、子实体干重、子实体直径、子实体长度和生物学效率)和活性成分指标(腺苷、多糖和 HEA)进行标准化处理,然后通过 Origin 软件进行聚类热图分析。由图 6 可知,10 株蝉花菌株可聚为 2 组,其中菌株 IC1-1、IC3-1、IC1-2 和 IC2-1聚为 1 组,说明这 4 个菌株的各项生物学指标和活性成分指标具有较近的距离。从聚类热图(图 6) 还可以看出,颜色越深说明指标数值越高,该组除了菌落生长速度外,对应的生物学指标和活性成分指标均较高,说明该 4 个菌株即为本次筛选的综合性状优异的菌株。菌株 IC2-2、IC4-1、IC3-2、IC5-1、IC5-2 和 IC4-2 聚为 1 组,从聚类热图(图 6)可以看出,该组填充的颜色整体偏浅,说明对应的生物学指标和活性成分指标相对较低,而菌种 IC2-2 对应的子实体长度、菌株 IC4-1 对应的腺苷含量和子实体长度、菌株 IC4-2 对应的菌落生长速度等填充颜色较深,说明这几项指标在上述菌株中数值较高。另外在聚类热图中,分生孢子分离的菌株指标填充颜色多数深于菌核分离菌株的颜色,说明分生孢子分离菌株的各项指标数值普遍优于菌核分离菌株。该分析结果与之前分析结果一致,较好地反映了不同菌株之间生物学指标和活性成分指标之间的差异和规律。
3 讨论与结论
蝉花在我国有着悠久的食药用历史和广泛的分布,但蝉花 2021 年才被纳入“新食品原料”,对蝉花菌株选育的研究也是鲜有报道。本研究采用不同分离方式,对 5 株野生蝉花进行分离,获取了 10 个蝉花菌株,进一步对不同蝉花菌株的菌落形态、生长速度、栽培出草和活性物质含量进行研究。研究发现不同野生蝉花标本分离的菌株和同一蝉花标本不同分离部位的菌株,除菌落生长速度外,各项指标均存在较大的差异,其中分生孢子分离菌株与组织分离(菌核分离)的菌株相比,液体菌种浓度普遍偏稀,但子实体鲜重和生物学效率普遍占优,分生孢子分离的菌株培育出来的子实体既长又粗,且相同培养时间子实体产生分生孢子少,更接近野生蝉花子实体的状态,这与郭玉峰等[31]对蛹虫草不同部位分离的研究和吕延华等[32]对冬虫夏草不同部位来源的菌株研究结果较为相近,说明分生孢子分离法能够使子代更好地遗传亲本的优良性状。菌落生长速度差异并不明显,其中仅菌株 IC4-2 菌落生长速度显著快于(P<0.05)其他 9 个菌株,其余 9 个菌株之间比较没有显著性差异(P>0.05),并没有发现菌落生长速度与子实体鲜重和生物学效率有明显的对应关系,这与郭尚[33]、韩丽红[23]等发现蛹虫草菌丝体生长速度快的菌株对应蛹虫草子实体颜色鲜艳、形态好和产量高的结论不同,与俞巍毅[34]发现灵芝菌丝生长速度快、在子实体发育初期出芝较快以及芝蕾形成量较多的结论也不一致。这可能因为蝉花属于无性繁殖的生殖方式[35],与蛹虫草、灵芝等食用菌繁殖方式不同,无性繁殖方式菌丝生长速度快,菌落生长速度很难表现出较大差异,所以蝉花的菌落生长速度并不能作为前期菌株优劣的评价依据。
通过对子实体活性成分检测发现,各活性物质含量和综合分值存在分生孢子分离菌株普遍优于菌核分离菌株的规律,这与郭玉峰等[31]对蛹虫草不同部位分离的研究结果较为相近。所有分离菌株中腺苷含量范围是 1.61~1.89 mg·g -1,其中菌株 IC3-1 最高,为(1.89±0.15 )mg·g -1,远高于张红霞等[36] 人工培育的蝉花子实体腺苷含量( 0.70±0.01 ) mg·g -1,这可能与腺苷的提取工艺和检测方法有关; 多糖含量范围是 39.7~50.1 mg·g -1,其中菌株 IC1-1 最高,为(50.1±5.2 )mg·g -1,高于葛飞等[37]蝉花菌丝多糖的含量 33.2 mg·g -1;N6-(2-羟乙基)腺苷(HEA)含量范围是 0.98~1.33 mg·g -1,其中菌株IC1-1 最高,为(1.33±0.15 )mg·g -1,高于 Lu 等[38] 甲 醇 提 取 测 定 人 工 培 养 蝉 花 HEA 的 含 量(0.834±0.005 )mg·g -1。对 3 种活性物质(腺苷、多糖和 HEA)进行综合评价,根据活性成分综合分值(D)排名和归一化法品质综合评价值(Y)排名, 排在前 4 名的依次为 IC1-1、IC3-1、IC1-2 和 IC2-1, 该结果与上述子实体鲜重和生物学效率存在着对应关系,与子实体产孢情况呈负相关,说明蝉花孢子过早的产生既影响到蝉花的生物学效率,又降低了子实体中的活性成分。这与刘义军等[39]发现大红芝子实体在弹孢期灵芝多糖含量呈现出下降趋势、总氨基酸含量在弹孢期也呈现降低趋势的研究结果较为相近。
根据各指标聚类热图分析(图 6)发现:在第 1 组的 4 个菌株中有 3 个为分生孢子分离方式获得,仅菌株 IC1-2 为组织分离方式获得;而第 2 组的 6 个菌株中有 4 个为组织分离方式获得,仅菌株 IC4-1 和 IC5-1 为分生孢子分离方式获得。同一株野生蝉花分离的菌株中分生孢子分离方式获得的菌株均排在组织分离获得的菌株前面,说明分生孢子分离获得的菌株的各项指标数值普遍优于菌核分离获得的菌株,而不同野生蝉花分离获得的菌株各指标存在较大差异。总体来看,野生状态虫体饱满、坚硬、子实体密度高且较长的蝉花分离出来的菌株各指标表现得更加优异,因此我们在选择菌株分离的时候尽量选择该类野生蝉花作为分离材料。
本文探究了野生蝉花不同分离方式对生物学特性和活性成分含量的影响,为后续菌种选育打下了良好的基础,但接下来仍需进一步开展栽培驯化研究和遗传稳定性分析。
参考文献:
[1] 李增智, HYWEL-JONES Nigel Leslie, 栾丰刚, 等. 与蝉花有关的虫草菌生物多样性的研究Ⅰ: 文献考证[J].菌物学报, 2020, 39(12): 2191-2201.
[2] 李增智, 陈祝安, 陈以平. 国宝虫草金蝉花[M]. 合肥:合肥工业大学出版社, 2014.
[3] 周兆永, 廖天月, 万晶琼, 等. 金蝉花的本草考证[J].中国野生植物资源, 2022, 41(5): 76-85.
[4] 于士军, 何玲艳, 万国平, 等. 不同干燥方式对培养蝉花孢梗束品质的影响[J]. 基因组学与应用生物学, 2020,39(6): 2712-2721.
[5] 李增智, HYWEL-JONE Nigel Leslie, 孙长胜. 虫草文化及科学史[J]. 菌物学报, 2022, 41(11): 1731-1760.
[6] 吕斌. “金蝉花”不可盲目食用[J]. 中南药学(用药与健康), 2017(9): 84.
[7] 纪伟, 苏文英, 刘晓梅, 等. 蝉花菌质在饲料中应用的安全性研究[J]. 中国饲料, 2023(5): 141-146.
[8] CHUNYU Y J, LU Z M, LUO Z S, et al. Promotion of metabolite synthesis in Isaria cicadae, a dominant species in the Cicada flower microbiota, by Cicada pupae[J]. J Agric Food Chem, 2019, 67(31): 8476-8484.
[9] ZHANG X F, HU Q B, WENG Q F. Secondary metabolites (SMs) of Isaria cicadae and Isaria tenuipes[J]. RSC Adv, 2019, 9(1): 172-184.
[10] SHARMA V P, KUMARI B, BARH A, et al. Biochemical profiling and cultivation of medicinal fungus Isaria cicadae (ascomycetes) from India[J]. Int J Med Mushrooms, 2021, 23(3): 91-101.
[11] XU Z C, YAN X T, SONG Z Y, et al. Two heteropolysaccharides from Isaria cicadae Miquel differ in composition and potentially immunomodulatory activity[J]. Int J Biol Macromol, 2018, 117: 610-616.
[12] LIU K B, WANG F, LIU G J, et al. Effect of environmental conditions on Synnema formation and nucleoside production in Cicada flower, Isaria cicadae (ascomycetes)[J]. Int J Med Mushrooms, 2019, 21(1): 59-69.
[13] 何雯雯, 贺亮, 李卫旗. 蝉花化学成分及人工培养的研究进展[J]. 中药材, 2019, 42(7): 1691-1696.
[14] 周思静, 乔宇琛, 刘桂君, 等. 蝉花的研究现状与分析 [J]. 食品与发酵工业, 2024, 50(1) : 341-350.
[15] LI D, GAI Y P, MENG J L, et al. GPI-anchored protein homolog IcFBR1 functions directly in morphological development of Isaria cicadae[J]. JoF, 2022, 8(11): 1152.
[16] HE Y Q, ZHANG W C, PENG F, et al. Metabolomic variation in wild and cultured cordyceps and mycelia of Isaria cicadae[J]. Biomed Chromatogr, 2019, 33(4): e4478.
[17] LI C R, WANG Y Q, CHENG W M, et al. Review on research progress and prospects of Cicada flower, Isaria cicadae (ascomycetes)[J]. Int J Med Mushrooms, 2021, 23(4): 81-91.
[18] 刘伟, 蔡英丽, 何培新, 等. 羊肚菌组织分离物交配型基因缺失现象分析[J]. 食用菌学报, 2020, 27(3): 1-6.
[19] 李刚. 草菇分子标记辅助育种研究[D]. 福州: 福建农林大学, 2008.
[20] 贺新生, 赵苗, 王亚洲, 等. 羊肚菌菌丝间融合与不融合现象研究[J]. 食药用菌, 2019, 27(4): 244-252.
[21] 罗友梅, 陈瑞雅, 张锐杰, 等. 羊肚菌单孢和多孢菌株大田出菇比较试验[J]. 食药用菌, 2022, 30(1): 43-47.
[22] 郭玉峰, 汪乔, 王祥锋, 等. 泰山野生蛹虫草优良菌株的筛选[J]. 生物技术通报, 2021, 37(11): 125-133.
[23] 韩利红, 付小林, 王远献, 等. 药用真菌蛹虫草优良菌株筛选及资源特性研究[J]. 热带作物学报, 2022, 43(8):1604-1612.
[24] 李昊杰. 四川省蝉花资源调查与利用研究[D]. 杨凌:西北农林科技大学, 2022.
[25] 林文杰, 杨婧, 胡湘婷, 等. 野生蝉花的分离鉴定及提取物抗氧化活性研究[J]. 食品与发酵科技, 2021, 57(5): 22-27.
[26] 纪伟, 刘晓梅, 苏文英, 等. 蝉花菌质在饲料中应用安全性初探[J]. 浙江农业科学, 2023, 64(2): 480-483.
[27] 解思友, 李春如, 龙文君, 等. 蝉花肾损伤保护作用的药理及临床研究进展[J]. 药物评价研究, 2020, 43(4): 630-635.
[28] 覃丽霞, 王玉芹, 李春如, 等. 蝉棒束孢菌孢梗束培植过程中主要成分含量的变化规律及其复方对小鼠睡眠的影响[J]. 菌物学报, 2020, 39(2): 362-371.
[29] CANDIOTI L V, GARCIA M D, GALERA M M, et al. Chemometric assisted solid-phase microextraction for the determination of anti-inflammatory and antiepileptic drugs in river water by liquid chromatography-diode array detection[J]. J Chromatogr A, 2008, 1211(1/2): 22-32.
[30] 朱丽娜, 刘艳芳, 张红霞, 等. 不同来源的蛹虫草子实体活性成分的比较[J]. 菌物学报, 2018, 37(12): 1695-1706.
[31] 郭玉峰, 周婷, 肖子扬, 等. 从天然蛹虫草不同部位分离菌株特性比较[J]. 菌物学报, 2021, 40(11): 2981- 2994.
[32] 吕延华, 梁关海, 朱志钢, 等. 冬虫夏草不同部位来源的菌株及多次传代固体发酵特性[J]. 菌物学报, 2016, 35(4): 433-439.
[33] 郭尚, 徐莉娜, 李艳婷, 等. 蛹虫草优良菌株的筛选[J].山西农业大学学报(自然科学版), 2020, 40(1): 17-21.
[34] 俞巍毅. 浙北地区灵芝优良品种的引种和选育[J]. 浙江农业科学, 2016, 57(4): 486-490.
[35] 高扬. 蝉棒束孢缺失有性子实体机理的研究[D]. 合肥:安徽农业大学, 2015.
[36] 张红霞, 高新华, 陈伟, 等. 人工培育蝉花与天然蝉花中化学成分的比较[J]. 食用菌学报, 2012, 19(3): 59-62.
[37] 葛飞, 夏成润, 李春如, 等. 蝉拟青霉菌丝体与天然蝉花中化学成分的比较分析[J]. 菌物学报, 2007, 26(1): 68-75.
[38] LU M Y, CHEN C C, LEE L Y, et al. N6-(2- hydroxyethyl) adenosine in the medicinal mushroom Cordyceps cicadae attenuates lipopolysaccharide-stimulated pro-inflammatory responses by suppressing TLR4-mediated NF-κB signaling pathways[J]. J Nat Prod, 2015, 78(10): 2452-2460.
[39] 刘义军, 卜梦婷, 刘洋洋, 等. 灵芝不同生长阶段营养品质变化规律研究[J]. 云南农业大学学报(自然科学), 2020, 35(6): 1061-1066.