蝉棒束孢交配型基因 MAT 的群体分布特征
满海乔,王娇,唐光甫,桂艳玲,韩 洁,赵杰宏*
(贵州中医药大学 药学院,贵州省中药生药学重点实验室 ,贵州 贵阳 550025)
摘要:【目的】探明药用真菌蝉棒束葩Isaria cicadae的交配型基因MAT的群体分布特征及其对蝉花有性生殖的影响,为提高蝉花的生殖率提供参考。【方法】从全国7省12市采集的100份蝉花标本中分离培养菌种,经形态观察、显微鉴定和ITS序列分析,获得各蝉花的无性型菌株;从各菌株DNA中克隆并分析MAT1-1-1和MAT1-2-1序列的结构和分布特征。【结果】在100株菌株中,13株菌株仅有1MAT1-1-1,79株菌株仅有 MAT1-2-1,8株菌株兼有2个序列。2MAT1-1-1(缺HMG a-box)极少与共存,常与 MAT1-2-1 伴存,但 FJDH7 和 FJDH9 菌株同时存在 和 MAT1-2-1 序列。聚类分析未发现MAT基因的地域分布相关性。【结论】群体中不同蝉棒束砲菌株的MAT基因有4种可能,兼有3种序列菌株的检出率极低,推测与蝉花有性生殖概率极低的现状有关。
关键词:蝉棒束胞;蝉花;交配型MAT基因;群体分布
中图分类号:S567.3+4
文献标识码:A
文章编号:1001-3601 (2022)09-0168-0090-09
Population Distribution Characteristics of Mating Type Gene MAT in Isaria cicadae
MAN Haiqiao, WANG Jiao, TANG Guangfu, GUI Yanling, HAN Jie, ZHAO J*iehong
(.Guizhou Key Laboratory of Pharmacognostics, School of Pharmacy, Guizhou University of Traditional Chinese Medicine , Guiyang, Guizhou 550025, China)
Abstract: 【Objective】The population distribution of mating type gene MAT of Isaria cicadae and the effect of Cordyceps cicadae on sexual reproduction are explored to provide a reference for increasing reproduction rate of C. cicadae. 【Method】The asexual strains of C. cicadae from each sample of 100 samples collected from 12 cities of seven provinces in China are obtained by morphological observation, microscopic identification and ITS sequence analysis. The structure and distribution of MAT1-1-1 and MAT1-2-1 of each strain are analyzed by cloning DNA of each strain. 【Result】There are 13 strains with 1MAT1-1-1, 79 strains with MAT1-2-1 and 8 strains with IMATl-l-land MAT1-2-1 among 100 strains. 2MAT1-1-1 (lacking HMG a-box) coexists with 1MAT1-1-1 rarely and with MAT1-2-1 often but FJDH 7 and FJDH 9 strains both have 1MAT1-1-1, 2MAT1-1-1 and MAT1-2-1 sequence. The clustering analysis shows there is no regional distribution correlation of MAT gene. 【Conclusion】There are 4 possible MAT genes in different strains of T. cicadae population. The detection rate of strains with 1MAT1-1-1, 2MAT1-1-1 and MAT1-2-1 sequences is very low, which may be related to extremely low sexual reproduction rate of C. cicadae.
Key words: Isaria cicadae ; Cordyceps cicadae ; mating type gene (MAT); population distribution
收稿日期: 2020-03-09
基金项目: 国家自然科学基金项目“蝉花有性型的基源再鉴定及其形成机制研究"(81960692)
作者简介: 满海乔(1995 —),女,在读硕士 ,研究方向 :药用真菌 。 E-mail: 382637098@qq.com
*通讯作者: 赵杰宏(1978 —汃男 ,教授 ,博士,从事中药生物技术研究 。 E-mail:1057987ll@qq.com
0 引言
【研究意义】蝉花 ( Cordyceps cicadae) 为我国传统名贵中药材,是由虫生真菌蝉棒束孢[isaria cicadae Miquel; 同物异名:蝉拟青霞 Paecilomyces cicadae (Miquel) Samson]寄生蝉若虫后形成的菌虫复合体[ l ] 。早在南北朝的《雷公炮炙论》中已有记载,历代医药典籍对蝉花有大量描述,其具疏散风热、透疹、明目退殿的功效[ 2 ] 。 近代研究表明,蝉花有改善肾功能、抗肿瘤、降血糖等药理作用[3-4] , 临床上有望成为冬虫夏草的替代药。蝉花主要生长环境为竹林以及热带 和亚热带的阔叶林等,遍布在中国秦岭至淮河以南的省份[5-6] , 因为其味道鲜美,营养丰富,民间有长期食用的习惯,已成为药食两 用的重要虫草资源。虫草往往有无性型和 有性型两种形态,自然界常见的是有性型, 如蛹虫草( Crodyceps militaris ) 和冬虫夏草(C. sinensis), 但蝉花却主要是无性型(即蝉棒束孢),其有性型极其稀缺,也无法通过人工培养获得,导致蝉花有性型的药材基原混 乱,至今也未知蝉花有性型稀缺的原因。因此,解析蝉花有性生殖的遗传调控机制对其 深入研发具有重要意义。【前人研究进展】 近年来 ,刘爱英等[ 7 ] 从 广西乐业天坑采集 1 株有性型和无性型共存的复型蝉花标本,并将其命名为神木蝉虫草( C. cicadae-SM sp. Nov. Liu Ai-Ying&Zou Xiao) ; 李增智等[8] 从江西井冈山采挖到蝉花有性型标本,命名 为 C. chanhua Z. Z. Li, F. G. Luan, Hyw el-Jones, C. R. Li & S. L. Zhang, sp. nov.,并指出与刘爱英等[7] 报道的标本在显微结构上存在区别,因此蝉花有性型仍存在争议。有性生殖能去除真菌有害基因突变, 还可以产生基因型多样性,增强环境适应性「9-10] 。 虫草属真菌的有性生殖主要由交配型基因 MAT 参与调控。MAT 基因及其编码蛋白具有调控生殖器官分化、营养繁殖和 子囊壳形成等作用[11-12] 。根据 MAT 基因在单倍体细胞中的分布情况,有性生殖可分为 同宗配合和异宗配合[ 13-14 ] 。 同宗配合是同时含 有 MAT1 - 1 和 MA T1 - 2 交 配 型 基因[15],1 株即可完成有性生殖;而异宗配合含有不同交配型基因,需不同交配型的菌株 共 同 完 成 有 性 生 殖[16-18] 。 MAT1 - 1 含MAT1 -1-1,MA Tl -1-2 和 MA T1-1 - 3 交配型基因,其中,MAT1 -1 -1 研究较多,编码含HMG a-box 保 守 域 的 转 录 因 子[19-20] ; MAT1 - 2 仅含交配型基因 MAT1- 2- 1 , 编码含 HMG box 保 守 域 的 转 录 因 子[21-22] 。【研究切入点】蝉花有性型稀缺,其是否与蝉棒束孢交配型基因 MAT 的序列结构、基因变异及基因分布特征有关,尚未见报道。【拟解决的关键问题】通过研究 7 省 12 市100 份蝉花 标本中虫生真菌蝉棒束孢的MAT基因,初步揭示蝉棒束孢 MAT 基因的分布特征和多样性,为提高蝉花的生殖率提供参考。
1 材料与方法
1.1 菌种
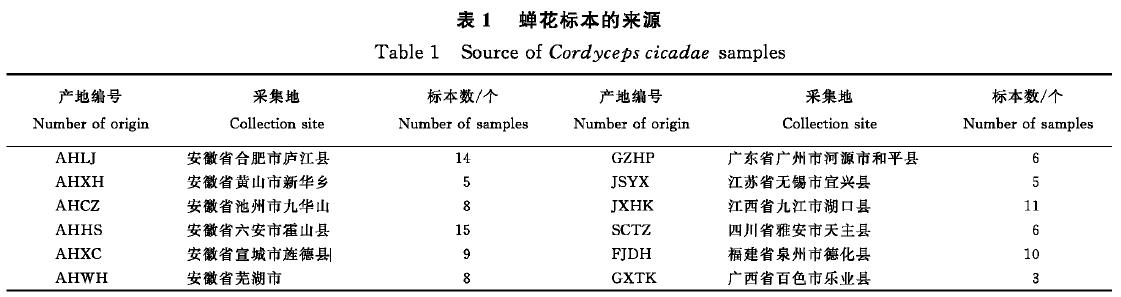
新鲜蝉花标本共100 个,采自全国 7 省 12 市(表1) 。用酒精棉球擦拭虫体表面,无菌摄子轻轻将其笳开,接种针挑取少许内菌核,接种于常规沙氏固体培养基上,培养 7 d 和 14 d 时观察记录各菌株的菌落形态及微观结构。
1. 2 ITS 和 MAT 序列扩增
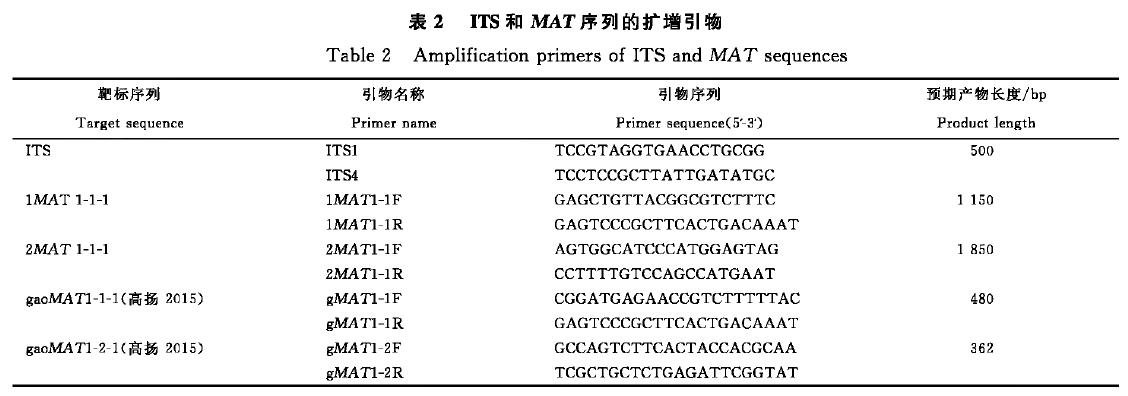
用基因组提取试剂盒(购自北京天根生 化)提取各菌株的基因组 DNA , 采用引物ITS1 / 4、 1MAT 1-1 F/ R、 2MAT 1-1F/ R、gaoMAT1- 1F / R 和 gaoMAT1-2F / R ( 表 2 ) 分别扩增目标序列,反应体系:上下游引物(10 µmol/ L ) 各 1 µL , 2 X Tag PCR Mix 10µL,模板 2 µ匕 最后用 dd H20 补足20 µL 。PCR 反应程序 :94 °C 预变性 5 min; 94°C 变性30 s , 55°C 退火 30 s, 1 2·c 延伸 30 s, 30 个循环; 1 2·c 延伸 10 min。PCR 产物送华大基因测序。
1. 3 聚类分析
获得的 ITS 或 MAT 序列 在 NCBI 进行Blastn (https: / /www. ncbi. nlm. nih. gov/blast/ ) 比对,选取覆盖率和相似性最高的菌种作为分子 鉴定结果。在 MEGA 7 中,将获得的不同 ITS 序列进行 Align 对齐,截去两端不齐序列后,选择 Phylogenetic Analysis, 点击 Phylogeny , 选择 Construct / Test Neigh bor-Joining Tree, 更改 No. of Bootstrap Repications 为 1000, 其余参数为默认值点击Compute, 最后查看和下载聚类树。
2 结果与分析
2.1 不同蝉花的形态多样性
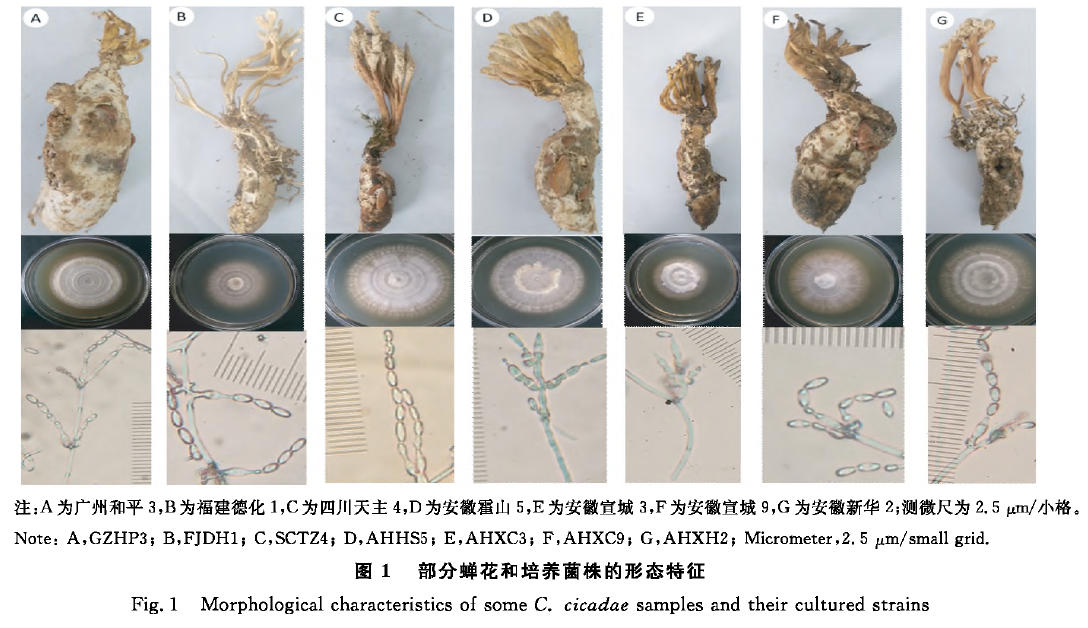
不同来源的蝉花标本均在虫体上具有典型的无性孢孢梗束结构,但未发现有性型子座。不同产地蝉花的孢梗束长短、色泽和产孢量差异较大,其中,福建产蝉花的孢梗束较细长;广州的较短,产孢量也较小;安徽宣城、安徽霍山、安徽新华、广州和平蝉花的孢梗束金黄色,福建德化的淡黄色,四川雅安的棕色。蝉花菌种在沙氏培养基上的菌落呈多层轮状。显微镜下各菌株产孢结构的瓶梗基部膨大,顶端骤尖,孢子为长椭圆形,串生,孢子大小 ( 5. 0 7. 5)µm X (2. 5 5. 0)µm, 产孢结构无明显差异,具有典型的蝉棒束孢显微特征(图1 ) 。
2.2 ITS 序列聚 类
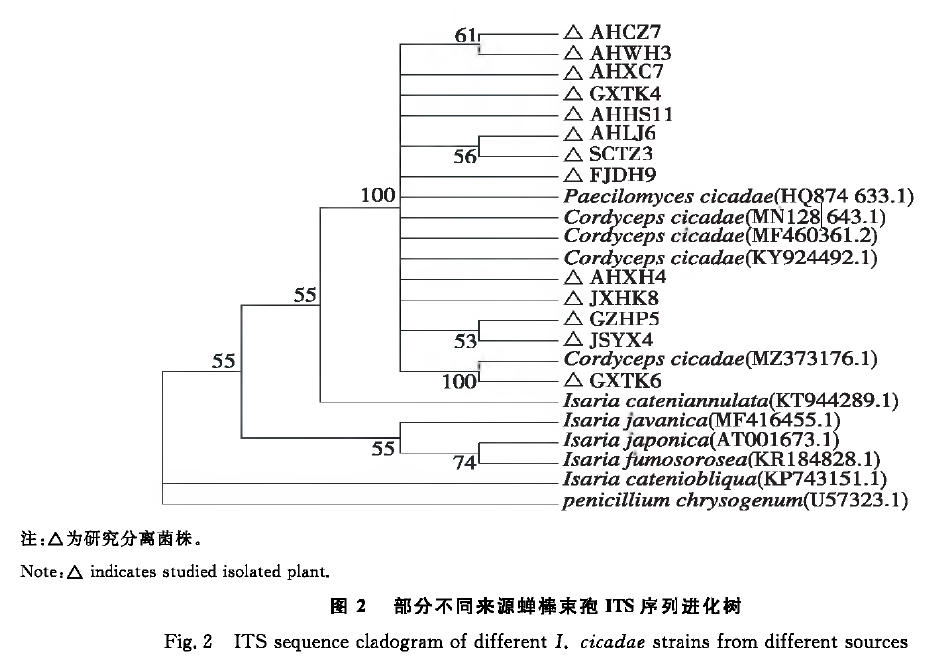
对从蝉花分离的 100 份菌株进行 IT S 序列 扩增和测序 ,经NCBi blas tn 比对 1 0 0 份菌株与 NCBI 上蝉花 C. cicadae (GenBank: MN128643. 1) 的序列相似性最高。随机选择从不同产地蝉 花分离 的 13 份菌株与 NCBI 上 蝉 拟 青 霄 P. cicadae (GenBank: HQ874633. 1) 、环链棒束孢 I . cateniannula ta(GenBank: KT944289. 1 )、玫烟色棒束孢I. fumosorosea(GenBank: KR184828. 1) 、斜链棒束孢 I. cateniobliqua (GenBank: KP743151. 1) 、爪哇棒束孢I. javanica(Gen- Bank:MF416455. 1)、日本棒束孢 I. japonica (GenBank: AT001673. 1 )以 及蝉花 C. cicadae ( MF460361. 2, KY924492. 1, MZ373136.1,MN128643. 1)的 ITS 序列聚 类分析,以产黄青霉Penicillium chrysogenum ( GenBank:U57323. 1 )为 外群,由 MEGA 7构建系统发育树(图2)显示,13份 菌株与蝉拟青霉和蝉花聚为一类,支持率为 100%,与其他棒束孢属菌种的亲缘关系较 远,进一步证明该试验的菌株是从蝉花分离 的蝉棒束孢。
2.3 MAT序列的克隆
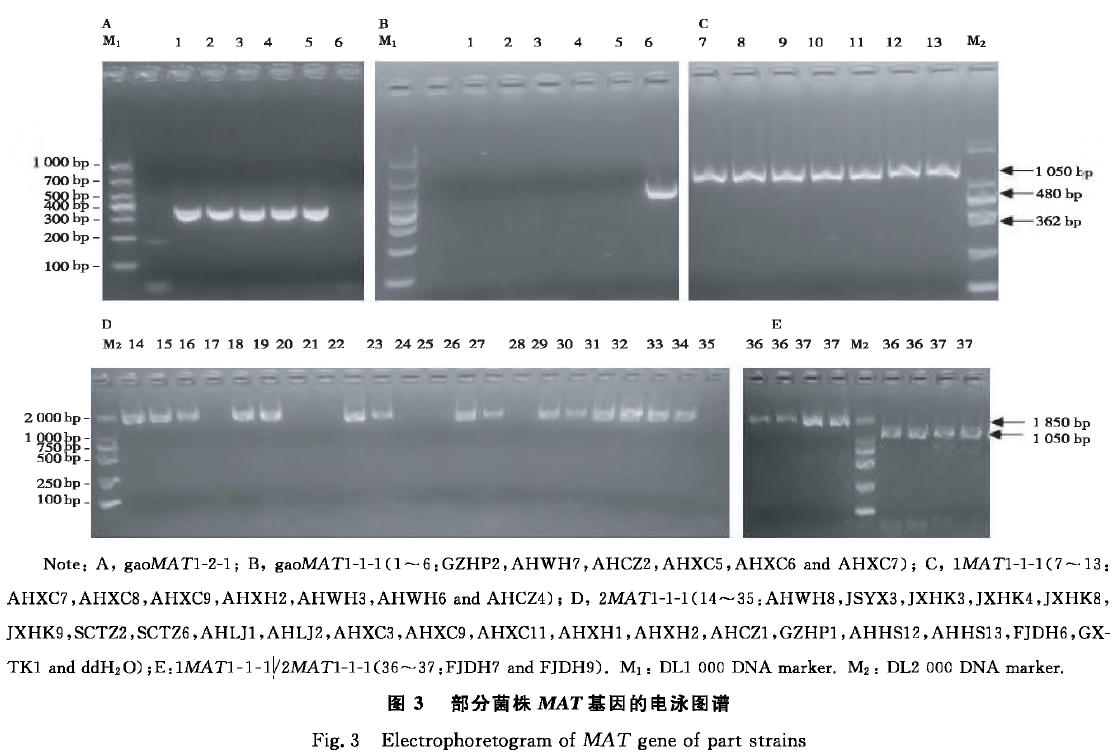
用引物分别克隆各菌株的1MAT1-1-1. 2MAT1-1-1. gaoMATl-1-l 和 gaoAMT1-2-1 靶标序列,获得的片段分别是1 150 bp、 1 850 bp.480 bp 和 362 bp(图 3),符合预期 大小。测序表明AMAT1-1-1有HMG a-box 功能域,2MAT1-1-1 缺失 HMG a-box, gaoMATl-1-1 1MAT1-1-1 的部分序列, gaoMAT1-2-1具有 HMG box。以 FJDH7 和 AHLJ1 菌株为例,1MAT1-1-1.2MAT1-1-1 分别与 NCBI 上蝉花 MATl-1-KGenBank: KP749925. 1)的碱基序列相似性为99. 80% (覆盖率100%)和99. 81%(覆盖率48%),氨基酸序列相似性为100%和42. 02% ; gaoMAT1-2-1 与 NCBI 上蝉花 MAT1-2-1 (GenBank:KP749926. 1)的碱基序列相似性 为99. 73% (覆盖率99%),氨基酸序列 相似性为90. 18%。可见,1MAT1-1-1和 gaoMAT1-2-1指向的基因具有功能, 2MAT1-1-1的基因可能序列和功能不全。
2.4 M4T序列的分布
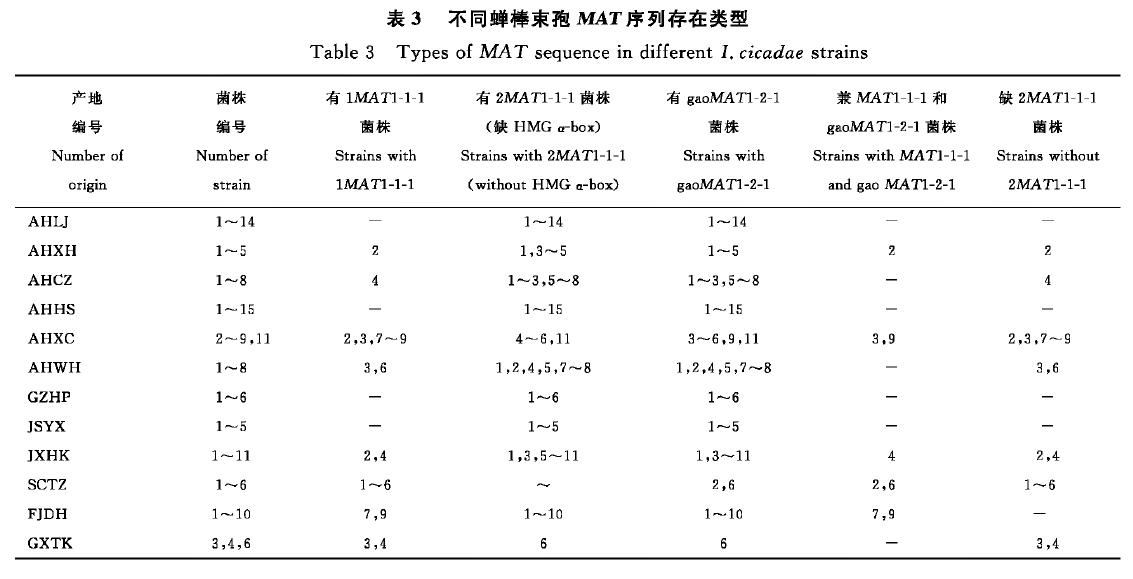
PCR检测结果显示,100个菌株中13个 菌株仅有1MAT1-1-1, 79个菌株仅有 gaoMAT1-2-1,其中,兼有 1MAT1-1-1 和 gaoMAT1-2-1交配型基因的菌株有8个 (表3),兼有菌株分布在安徽新华、安徽宣城、江西湖口、四川天主和福建德化。2MAT1-1-1 与 gaoMAT1-2-1 同时存在,有1MAT1-1-K包括兼有 gaoMAT1-2-1)的菌株未检测到2MAT1-1-1,但福建产FJDH7和FJDH9菌株同时存在1MAT1-1-1、2MAT1-1-1 和 gaoMAT1-2-1 序列(图 3D)。 多数地区的菌株以gaoMAT1-2-1占优势,而四川天主和广西乐业菌株以1MAT1-1-1占优势。安徽庐江、安徽霍山、江苏宜兴和广州和平的菌株未检测到1MAT1-1-1.从数据上看,蝉花有同宗配合的潜力,也存在异宗配合的可能,有性生殖的概率较高,但与蝉花有性型稀缺的实际情况不符。
2.5 MAT序列聚类和结构特性
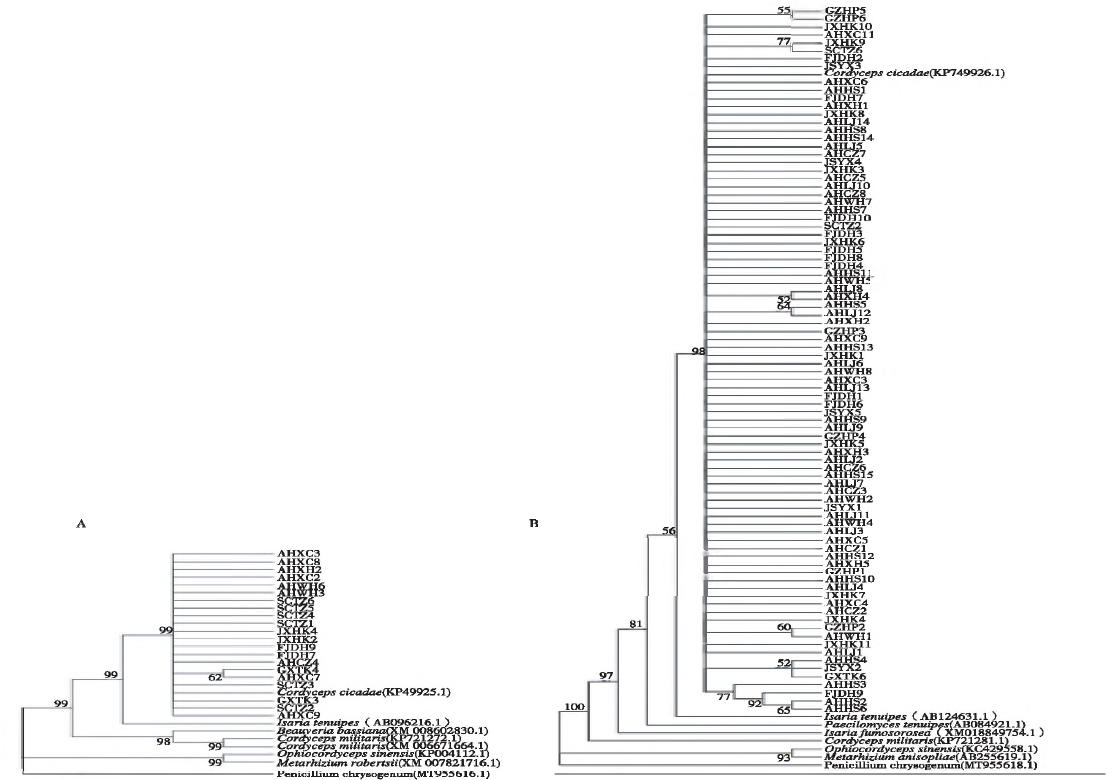
对21个菌株的序列、87个菌株的gaoMAT1-2-1序列分别进行聚类分析(图4),21个与蝉花已知序列(GenBank: KP749925. 1)聚为一枝,支持率99%; 87个gaoMAT1-2-1与蝉花已知序列(GenBank: KP749926. 1)聚为一枝,支持率98%。安徽来源的多株蝉棒束孢未单独聚类成群,可见相同来源蝉棒束孢菌株间无明显地域居群分布相关性,与参比菌种的亲缘关系较远,其中亲缘关系较近的参考菌种是细脚棒束孢(Isarta tenuipes) 。
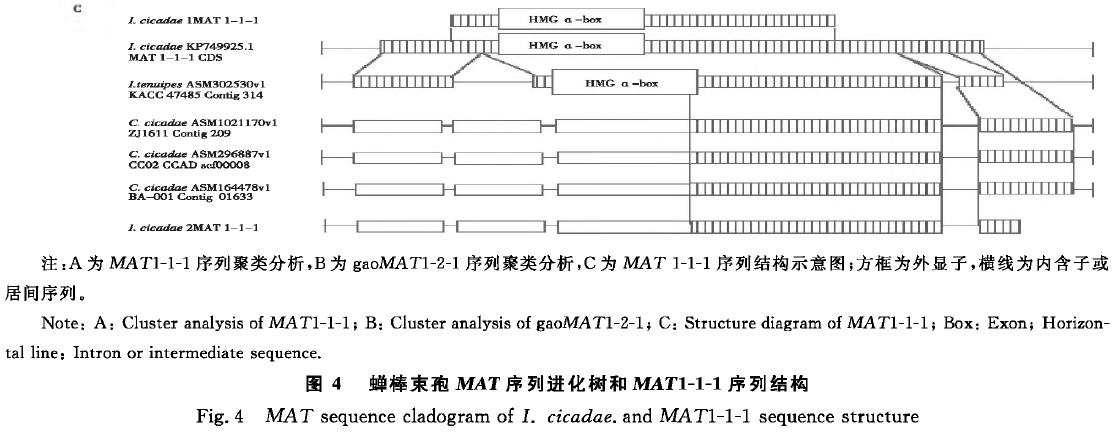
序列比对结果(图4C)显示,1MAT1-1-1为蝉花MAT1-1-1CKP749925. 1)的一部分外显子序列,2MAT1-1-1为NCBI上现有3个独立蝉花基因组(GenBank: ASM296887vl.ASM1021170v1和 ASM164478v1)的部分基因序列,在3个蝉花基因组仅有2MAT1-1-1和 gaoAMT1-2-1序列,未发现2MAT1-1-1 与 仅有 30%序列覆盖(覆盖区域相似性99. 69%),推测缺失HMG a-box 的 2MAT1-1-1 无功能。
3 讨论
蝉花在食品和临床等领域有较广泛的应用,但至今其有性型仍存争议[7-8],现有中医药典籍《中药大辞典》和《中华本草》等著作中 记载的蝉花有性型更是被上述报道推翻。出 现以上现状的主要原因是蝉花有性型非常稀 缺,难以采集也无法人工培养,至今对蝉花的 有性生殖知之甚少。
围绕蝉花的交配型基因研究,高扬等[18] 将采自安徽各地的40株蝉棒束孢分成了 2 组,分别含有交配型MAT1-1-1和MAT1-2-1 序列,比例接近1 : 2,且未发现同时含有2种 交配型基因或缺少2种基因的菌株。本研究 的靶标序列1MAT1-1-1是根据高扬等「倒发 表的蝉花 MAT1-1-1 序列(GenBank: KP749925. 1)设计引物扩增的部分序列 (163~1 334 bp),靶标序列 2MAT1-1-1 是 利用 MAT1-1-1在NCBI与蝉花基因组 blastnCdatabase: whole-genome shotgun contigs (wgs) ;organism: cordyceps cicadae〕,根 据获得的最高相似序列及其上下游序列 (GenBank:WJIA01000209)设计引物进行扩增分析。
通过检测安徽省6地市59个蝉花标本 分离的蝉棒束鞄菌株发现,AHXH2、 AHXC3 和 AHXC9 同 时含有 MAT1-1-1 (即 1MAT1-1-1 ) 和 MAT1-2-1 (即 gaoMAT1-2-1)序列;来自其他6省市的41 个蝉花标本分离的菌株中检测到5个菌株同 时含有以上2个交配型基因序列,检出率为 8%;其他菌株仅含其中1个交配型基因,也 未发现完全缺失的菌株。全部1MAT1-1-1 与gaoMAT1-2-1的比例为24. 14% (接近 1 : 4),兼有菌株、单菌株、单 gaoMAT1-2-1 菌株的比例为 1 : 1. 625 : 9.875(接近1 : 1.5 : 10),可见不同交配型分 布的比例不对等,对稀少的虫草来说,其有性 生殖变得更加困难。
LU等⑵]对蝉花BA-001菌株的基因组 (GenBank: AEIW00000000)分析发现,蝉棒束孢MAT1-2和1个缺少HMG a-box截短 的MAT1-1-1同时存在,在各时期转录组中 该截短基因不表达,并且通过单基因或双基 因敲除MAT1-2和MAT1-1-1对无性型孢 梗束的形成无影响。另外,这种截短现象也 发生在植物病原Grosmannia spp. [24:、甲虫 相关真菌 Leptographium procerum 和 L. profanurr^-2^中。本研究从100份蝉棒束孢I. cicadae菌株中也检测到此段截短的 MAT1-1-1 (即 2MAT1-1-1 ),发现有 1MAT1-1-1C包括兼有 gaoAMT1-2-1)的菌 株却无 2MAT1-1-1, 2MAT1-1-1 常与 gaoMAT1-2-1共存,这与上述报道以及NCBI 上现有3个独立的蝉花基因组(GenBank: ASM296887vl, ASM1021170vl 和 ASM164478vl) 序列一致,但福建产FJDH7和FJDH9菌株含有 1MAT1-1-1,2MAT1-1-1 和 gaoMAT1-2-1 序列, 暗示蝉花交配型基因在进化过程中有着复杂 的表现形态,似乎蝉棒束孢同时存在同宗配 合和异宗配合的潜力,处于特殊的进化阶段。 对于同宗配合和异宗配合的进化,早期认为 两者为共同起源,即MAT基因为染色体上 同一 DNA保守区,该区发生突变,导致不同 交配方式产生,后又有研究支持子囊菌中的 异宗配合起源于同宗配合[26-27]。因此,蝉花 可能成为研究交配型基因进化的重要样本。
通过聚类分析未发现MAT基因的地域 分布相关性特征,这可能与各菌株间缺乏基 因交流,主要采用无性生殖有关。推测蝉花 为了充分适应生存环境,可能通过某种未知 的机理,抑制或中断了有性生殖途径,逐渐将 无性生殖方式保留。
4 结论
从7省12市100份蝉花标本中分离出 蝉棒束孢菌株,对各菌株的MAT基因分析 发现,有的菌株仅有1MAT1-1-1或MAT1-2-1, 兼有菌株占8%。此外还发现,截短的 MAT1-1-1 (即 2MAT1-1-1 )普遍不与 1MAT1-1-1共存,常与MAT1-2-1伴存,但 FJDH7和FJDH9菌株却同时存在1MAT1-1-1,2MAT1-1-1 和 MAT1-2-1 序列,可见 群体中不同蝉棒束孢菌株的MAT基因有4 种可能:单1MAT1-1-1、兼有MAT1-2-1和 1MAT1-1-1、兼有 MAT1-2-1 和 2MAT1-1-1、共有序列,给蝉花有性生殖带来不确定性。推测蝉花有 性型稀缺与MAT基因的分布模式多样及比 例失衡有密切关系。
参考文献:
[1] 王 琼,王春雷,何福根,等.地方药材金蝉花的研究 进展[J].肿瘤学杂志,2013,19(3):227-230.WANG Q,WANG CL,HEF G,et al. Advances in stud- ies on the local medicinal materials of Isaria Cicadae[J]. Journal of Oncology,2013,19(3) : 227-230.
[2] 国家中医药管理局《中华本草》编委会.中华本草[M].上 海:上海科学技术出版社,1999:499-500. State Administration of Traditional Chinese Medicine Editorial Board of the Chinese Materia Medica. Chinese herbal medicine [M], Shanghai: Shanghai Scientific and Technical Publishers, 1999 :499-500.
[3] 朱碧纯,柴一秋,章思思,等•蝉花虫草活性成分的抗 惊厥作用[J1菌物学报,2016,35(5):619-627. ZHU B C,CHAI Y Q, ZHANG S S,et al. Anticonvulsant activity of active constituents from Cordyceps cicadae[J] Mycosystema, 2016, 35(5) *619-627.
[4] WANG J H, ZHANG Z L,WANG YQ,et al. Chemical constituents from mycelia and spores of fungus Cordyceps cicadae [J]. Chinese Herbal Medicines, 2017, 9(2):188-192.
[5] 宋 斌,林群英,李泰辉,等.中国虫草属已知种类及 其分布口]・菌物研究,2006(4)=10-26. SONG B,LIN Q Y,LI T H,et al. Known species and distribution of Cordyceps from China [J]. Journal of Fungal Research,2006 (4) : 10-26.
[6] 李建平,张 铁,曾文波.蝉花虫草分类地位及其遗 传多样性研究进展[J].中国食用菌,2019,38(11): 1-5. LI J P,ZHANG T,ZENG W B. Taxonomic status and genetic diversity o£ Cordyceps cicadae Q J]. Chinese Edible Fungi,2019,38(ll):l-5.
[7] 刘爱英,李 忠,邹 晓,等■中国蝉花资源研究 应用[M].贵阳:贵州科技出版社,2012:57-77. LIU A Y, LI Z, ZOU X, et al. Research and application of Isaria cicadae resources in China [M]. Guiyang :Guizhou Science and Technology Press, 2012: 57-77.
[8] 李增智,栾丰刚,Hywel-Jones Nigel L,等.与蝉花有 关的虫草菌生物多样性的研究u :重要药用真菌蝉花 有性型的发现及命名[J1菌物学报,2021, 40(1):95-107. LI Z Z, LUAN F G, HYWEL-JONES N L, et al. Biodiversity of Cordyceps associated with Cordyceps cicadae II: Discovery and nomenclature of sexual forms of important medicinal fungi Cordyceps cicadae[X. Mycosys- tema,2021, 40(1): 95-107.
[9] HEITMAN J,SUN S, JAMES T Y. Evolution o£ fungal sexual reproduction [J]. Mycologia, 2013, 105: 1-27.
[10] ENEIV,BENNETT R J. The cryptic sexual strategies of human fungal pathogens[J]. Nature Reviews Microbiology,2014,12(4) 239-251.
[11] COPPIN E,DEBUCHY R,ARNAISE S,et al. Mating types and sexual development in filamentous Ascomy- cetes[J]. Microbiology and Molecular Biology Reviews,1997,61(4) : 411-428.
[12] 雍明丽,于俊杰,刘永锋.交配型基因在真菌有性生 殖中的作用研究进展[J1江苏农业学报,2019, 35(5):1254-1261. YONG M L,YU J J,LIU Y F. Advances in the role of mating type genes in fungal sexual reproduction!!J1 - Jiangsu Agricultural Journal, 2019, 35(5) :1254-1261.
[13] MORA C, TITTENSOR D P, ADL S, et al. How many species are there on earth and in the ocean? [J]. PLoS Biology,2011,9 (8) :el001127. https://www. ncbi. nlm. nih. gov/pmc/articles/PMC3160336/pdf/pbio. 1001127. pdf.
[14] ZHENG P,XIA Y L,ZHANG S W,et al. Genetics of Cordyceps and related fungi[J]. Applied Microbiology and Biotechnology,2013,97(7) : 2797-2804.
[15] GLASS N L,VOLLMER S J,SIABEN C,et al. DNAs of the two mating-type alleles of Neurospora crassa are highly dissimilar [J]. Science, 1988, 241(4865) :570-573.
[16] PAOLETTI M, SEYMOUR F A, ALCOCER M J, et al. Mating type and the genetic basis of self-fertility in the model fungus Aspergillus nidulans[J]. Current Biology,2007, 17(16) :1384-1389.
[17] ZHANG S,ZHANG Y J,LIU X Z,et al. Cloning and anal_ ysis of the MAT 1-2-1 gene from the traditional Chinese medi&nal fungus Ophiocordyceps sinensis [J]. Fungal Bology, 2011, 115(8):708-714.
[18] 高 扬,章 西,黄 勃.蝉棒束孢交配型基因的分析和检测[J] 中国生物防治学报,2015,31(6):860-867. GAO Y, ZHANG X, HUANG B. Analysis and detection of mating type gene of Cordyceps cicadae[J]・ Chinese Journal of Biological Control, 2015 , 31 (6): 860-867.
[19] METZENBERG R L, GLASS N L. Mating type and mating strategies in Neurospora[J]. Bioessays, 1990, 12(2):53-59.
[20] TURGEON B G. Application of mating type gene technology to problems in fungal biologyQJ]. Annual Review of Phytopathology, 1998, 36(1):115-137.
[21] TURGEON B G, YODER O C. Proposed nomenclature for mating type genes of filamentous Ascomycetes [J]. Fungal Genetics and Biology, 2000, 31(1) :l-5.
[22] WADA R,MARUYAMA J I, YAMAGUCHI H,etal. Presence and functionality of mating type genes in the supposedly asexual filamentous fungus Aspergillus oryzae [J]. Applied and Environmental Microbiology? 2012, 78(8):2819-2829.
[23] LU Y Z,LUO F F,CEN K,et al. Omics data reveal the unusual asexual-fruiting nature and secondary metabolic potentials of the medicinal fungus Cordyceps cicadae [J]. BMC Genomics, 2017, 18(1):668-682.
[24] TSUI CK,DIGUISTINI S,WANG Y,et al. Unequal recombination and evolution of the mating-type (MAT) loci in the pathogenic fungus Grosmannia clavigeraand relatives [J], G3 (Bethesda) ,2013,3(3) : 465-480.
[25] DUONG T A,DE BEER Z W, WINGFIELD B D,et al. Characterization of the mating-type genes in Leptographi- um procerum and L.eptographivm profanum [J]. Fungal Biol, 2013, 117(6):411-421.
[26] TURGEON B G, BOHLMANN H, CIUFFETTI L M, et al. Cloning and analysis of the mating type genes from Cochliobolus heterostrophus [J]. Molecular and General Genetics MGG,1993,238(l/2):270-284.
[27] SUN S, LIN X R, COELHO M A, et al. Mating-system evolution: All roads lead to selfing [J]・ Current Biology, 2019, 29(15):743-746.